


植物病毒“策反”去泛素化酶,破除表观沉默
近日,中国科学院华南植物园研究员邓书林团队联合新加坡淡马锡生命科学研究所,揭示了植物DNA病毒通过致病蛋白P6“劫持”宿主去泛素化酶UBP12/13,重塑病毒微型染色体表观修饰,解除宿主对病毒微型染色体的表观遗传沉默,从而促进病毒侵染的分子机制。相关成果发表于《公共科学图书馆·病原体》(PLOS Pathogens)。
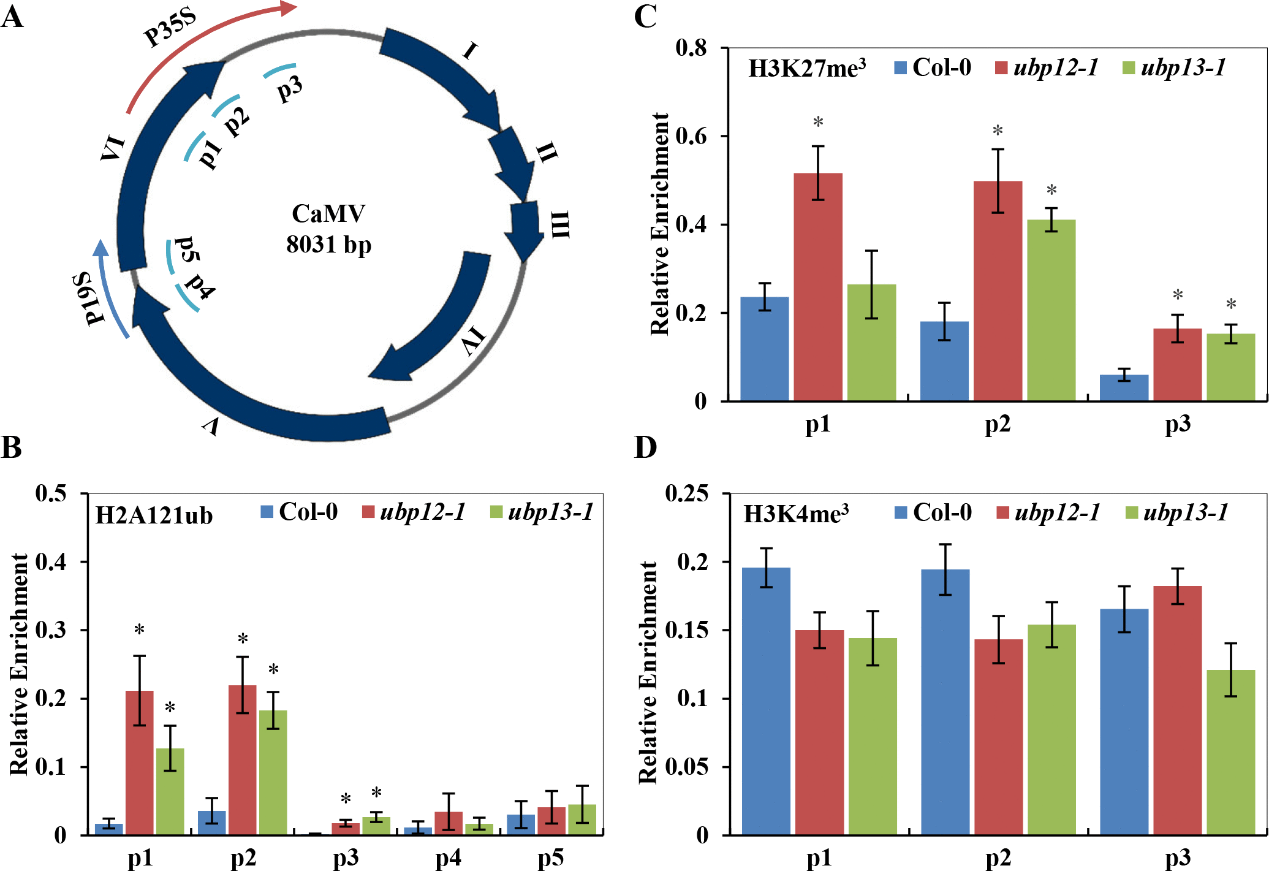
UBP12/13影响CaMV微型染色体上H2Aub和H3K27me3的修饰水平。研究团队供图,下同 植物DNA病毒是一类破坏性极强的农作物病原体,包括双链DNA病毒(如花椰菜花叶病毒科)和单链DNA病毒(如双生病毒科)。病毒侵染宿主后,其基因组会被宿主组蛋白包装成“微型染色体”。组蛋白翻译后修饰在病毒复制和宿主免疫防御中扮演关键角色:宿主可通过给病毒微型染色体加上抑制型修饰,对病毒基因转录“关闸”;病毒如何破解这道染色质层面的防线,仍有待解析。 研究团队在国家自然科学基金等项目资助下,以花椰菜花叶病毒为对象,利用亲和纯化-质谱筛选花椰菜花叶病毒致病蛋白P6的宿主互作蛋白,发现拟南芥去泛素化酶UBP12、UBP13可与P6结合。酵母双杂交、Pull-down、免疫共沉淀、双分子荧光互补等一系列实验证实,P6借助UBP12/13的MATH结构域,在细胞核内直接与这两个酶互作。 遗传学分析显示,ubp12/13突变体对花椰菜花叶病毒的抗性显著增强,发病进程延迟,病毒DNA及病毒转录本积累量明显下降;而过量表达UBP12/13的植株病症加重、病毒拷贝数升高。进一步验证表明,UBP12的去泛素化酶活性是促进病毒侵染的必要条件;酶活性丧失的突变体不再具有促侵染能力。
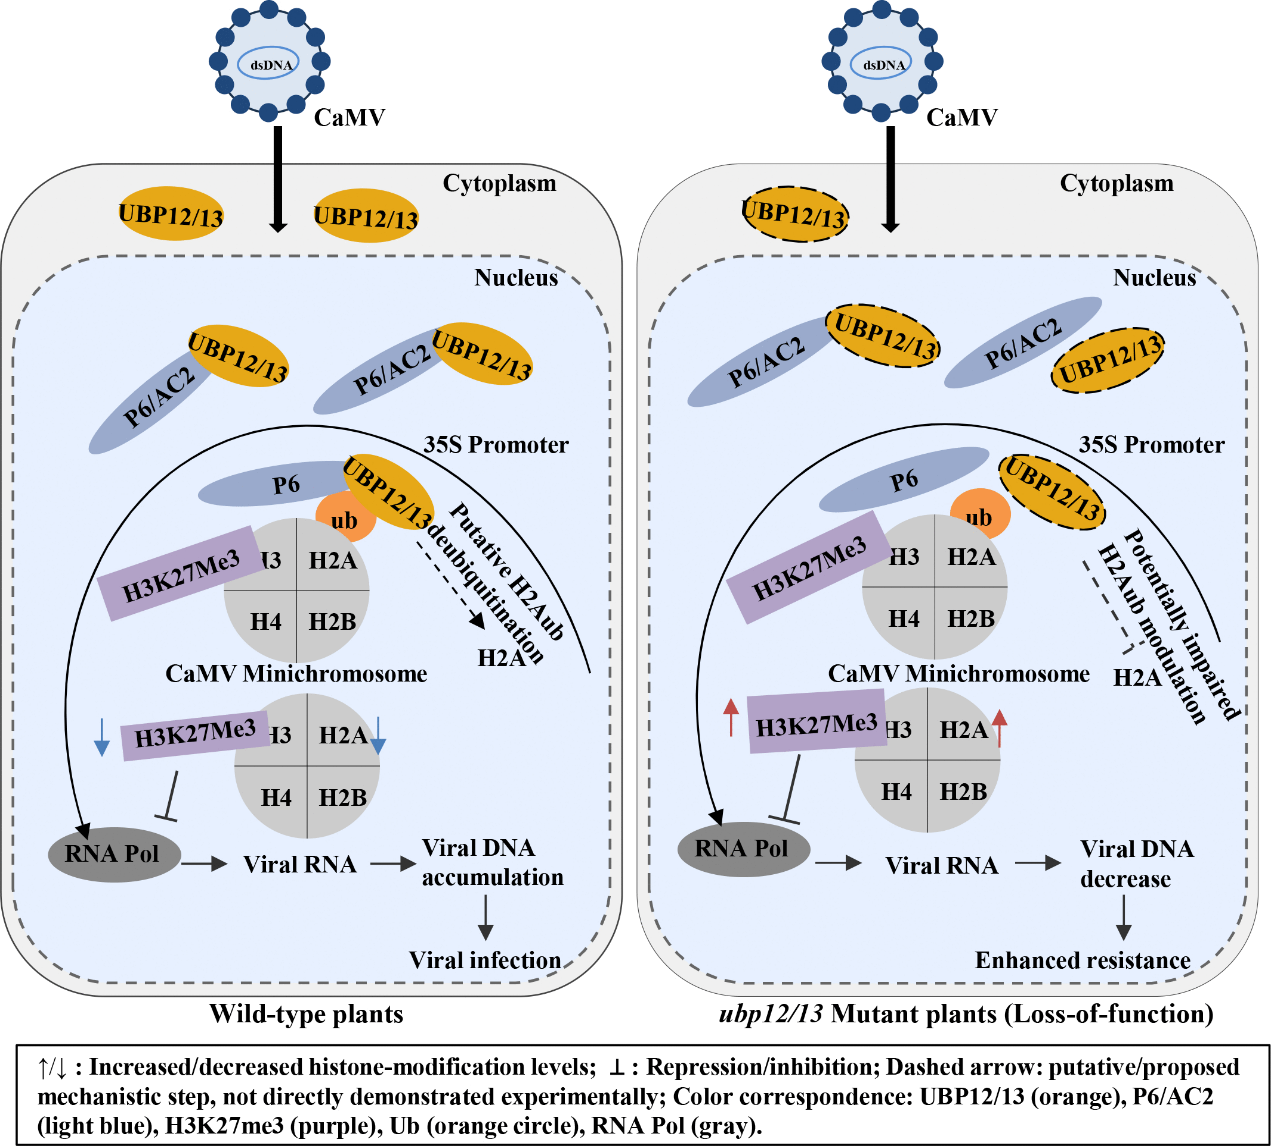
CaMV P6利用UBP12/13减轻宿主表观遗传沉默并促进病毒感染的分子模型。 UBP12/13能够去除组蛋白H2A单泛素化(H2Aub)。染色质免疫沉淀-定量PCR结果显示,UBP12/13可特异性改变病毒35S启动子的组蛋白修饰状态,减少抑制型修饰H2Aub、H3K27me3水平,从而解除对病毒转录的抑制。更重要的是,双生病毒CaLCuV的致病蛋白AC2同样能在细胞核内靶向UBP12/13;ubp12/13突变体对CaLCuV的抗性也增强。这说明“劫持”UBP12/13是不同植物DNA病毒共有的侵染策略。 基于上述结果,团队提出机制模型:在正常植株中,病毒致病蛋白P6/AC2进入细胞核并与UBP12/13互作;UBP12/13发挥去泛素化功能,降低病毒35S启动子上的H2Aub、H3K27me3抑制性修饰,解除宿主对病毒微型染色体的表观沉默,使病毒大量转录复制并完成侵染。而在ubp12/13突变体中,UBP12/13功能缺失,病毒35S启动子维持高水平抑制性修饰,病毒转录受抑,植株抗性增强。 该研究阐明了植物DNA病毒操纵宿主表观遗传修饰途径的全新机制,为创制抗病毒作物提供了全新潜在靶点。