


管理越精细,城市植物越趋同?
城市绿化中大量使用栽培植物。这些植物的多样性格局,既反映生态过程,也折射人类的选择偏好与管理决策。然而,在区域尺度上,究竟是人为因素还是自然因素与栽培植物β多样性关联更强,此前在热带岛屿城市中尚缺乏系统研究。 10月9日,《景观与城市规划》刊发了海南大学教授王华锋团队与云南师范大学副研究员高志文团队合作的最新成果。他们以海南11个城市植物为研究对象,基于1234个城市功能单元的系统调查,记录924种栽培植物,从分类学、系统发育和功能三个维度,解析热带城市栽培植物β多样性的空间格局。 “与气候、地理等自然因素相比,人为因素尤其是绿化管理变量,与β多样性的关联更为一致。”论文共同通讯作者王华锋告诉《中国科学报》,管理强度较高的区域,不同城市功能单元之间的植物组成差异相对较小,呈现同质化趋势。但他同时强调,这只是统计关联,并非因果证明;且所有变量合计解释的变异比例很低,不宜把结论简化为“管得越少越好”。
王华锋(前排右四)团队。受访者供图,下同 给城市绿化做一次“大体检” 要理解区域尺度上的城市植物多样性,需先理解β多样性。简单来说,β多样性衡量的是不同地点之间物种组成的差异:差异大,β多样性高;差异小,群落就相似。 海南是中国唯一的热带岛屿省份,高温多雨、台风频发,城市绿化高度依赖人工养护。“我们的研究希望回答三个问题:热带城市中,人为因素与自然因素谁与栽培植物β多样性关联更强?不同类型城市功能单元之间的植物组成有何差异?本土与外来植物响应是否不同?”论文第一作者、海南大学博士生周琴说。 在国家自然科学基金等项目资助下,王华锋团队自2015年起每年带着本科生和研究生在海南城市开展实地植物样方调查,累计建立1234个城市功能单元。城市功能单元指有明确边界、承担主要城市服务功能的单元,分交通区、居住区、休闲娱乐区、公共服务区和工商区等不同类型。布点先在ArcGIS中生成大小一致的公里网格,公里网格大小随城市的建成区面积变化而变化,例如海口的公里网格大小为500米×500米网格,在每个公里网格中按照代表性和典型性选取城市功能单元,再结合地面调查实际核实城市功能单元的边界,形成矢量图。尽量使每个公里网格覆盖1-4种不同的城市功能单元类型,是为了最大程度地体现该城市生态系统的基本特征。 然后,在每个城市功能单元内设置1-3个20米×20米的植物样方。如果城市功能单元绿地不足20米×20米就根据实际大小设置样方。每块样方设1个20米×20米乔木样方,其内嵌套5个5米×5米灌木样方和5个1米×1米草本样方。调查记录所有栽培植物的种类、生活型(乔木、灌木、草本)和来源(本土/外来),并测定乔木胸径、树高与冠幅等,最后将乔灌草信息记录汇总到同一城市功能单元名下,代表这一个城市功能单元的植物多样性现状。这样做的目的是为了融合不同来源(遥感、地面调查和社会经济等)的植物数据,因为城市功能单元好比是城市的“细胞”,在每个细胞里特征较为均质。按此方法,海南11城市共记录924种栽培植物,分属604属167科。 预测变量分两类:自然因素,包括年均温、年降水量、太阳辐射、风速、纬度、经度、海拔等;人为因素,包括浇水、施肥、修剪频率,以及房价、建筑年龄、人口密度、城市化率、城市面积、距城市边界距离等。统计上分别计算分类学、系统发育和功能β多样性,并用Jaccard和Srensen指数分解为周转与嵌套组分。通俗地说,周转是“你有这些种,我有另一些种”;嵌套是“物种少的地方,像是物种多的地方的子集”。 “系统发育β多样性看亲缘关系差异,功能β多样性看性状组合差异。”周琴介绍,主分析采用线性混合效应模型,把城市作为随机效应,控制单元嵌套于城市的结构。 外来种占七成,管理越勤群落越像? 924种栽培植物中,外来种655种,占70.89%;本土种269种,占29.11%。生活型以乔木最多,388种,占42.00%;草本占32.80%,灌木占25.20%。海南城市绿化对外来观赏植物的依赖程度之高,由此一目了然。 科级上,棕榈科在11个城市均有分布,豆科出现于10个城市,茶茱萸科仅出现于1个城市。属级上,榕属22种、大戟属12种、蒲桃属10种最丰富,榕属在全部11个城市都有记录。种级上,龙船花出现频率最高,出现于46.17%的城市功能单元中;三角梅次之,出现于32.85%的城市功能单元中。
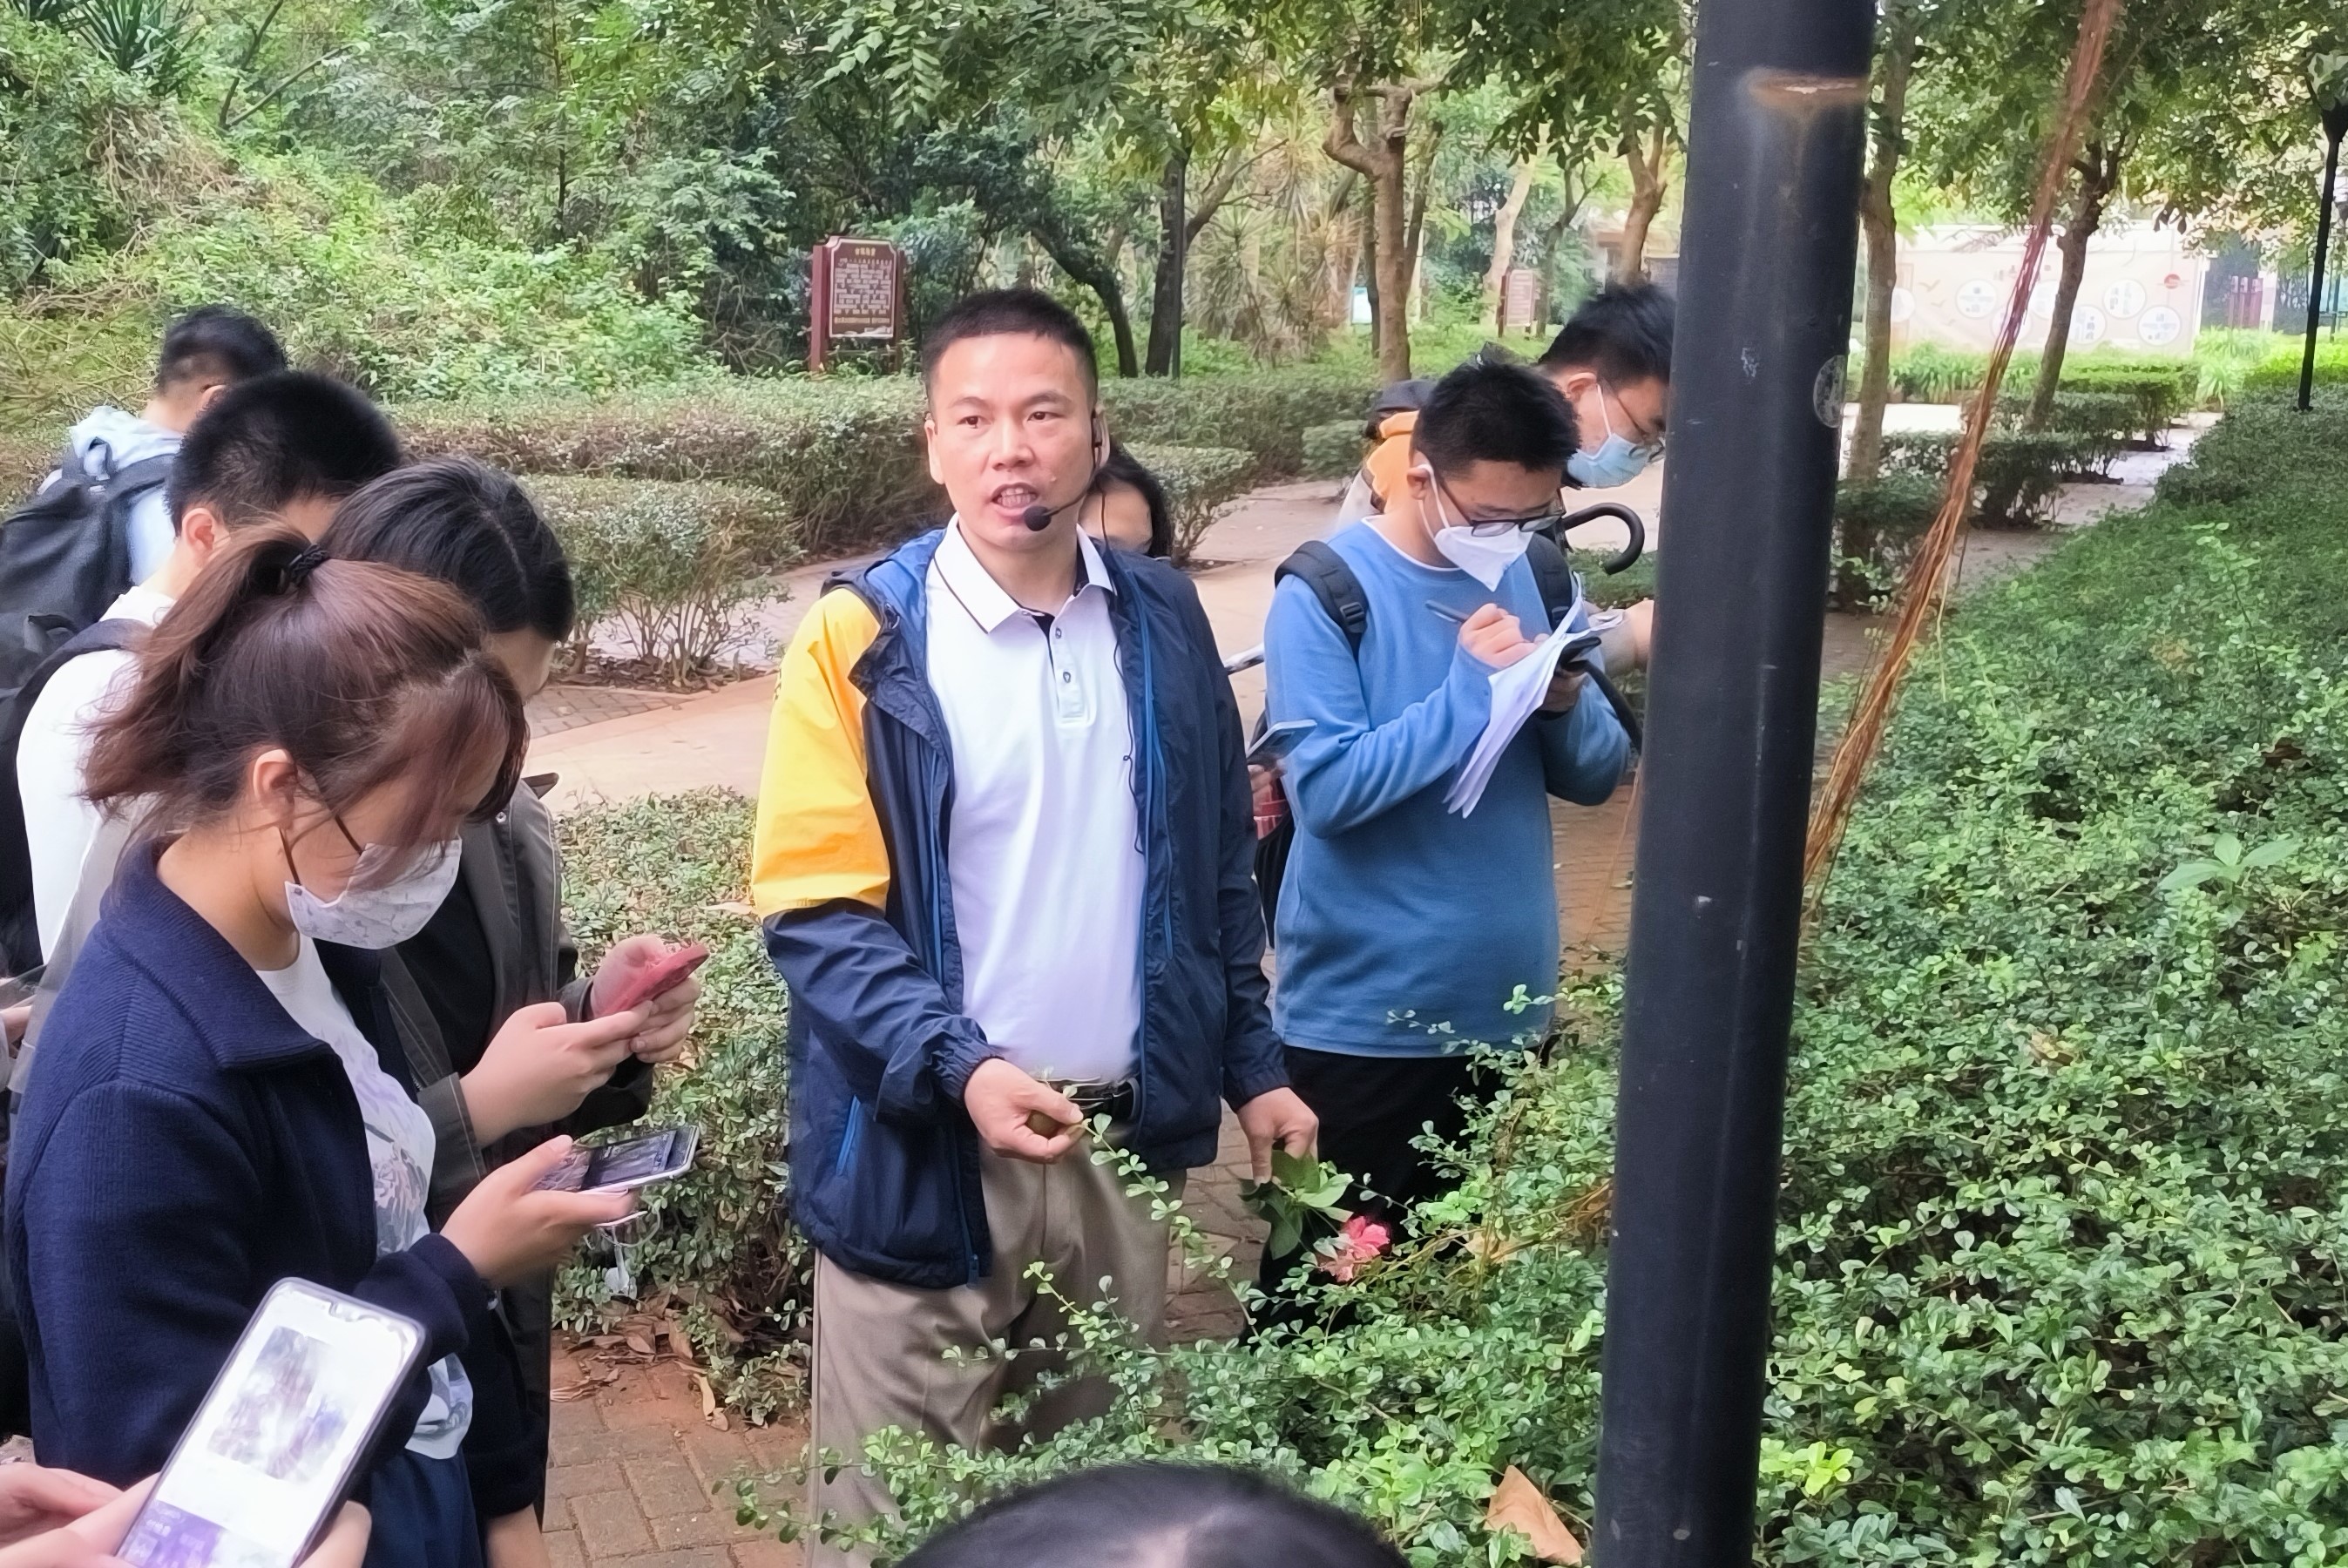
王华锋向本科生介绍植物。 需要指出的是,“龙船花”一名涵盖多个相近类群,拉丁学名Ixora chinensis,学界界定并不统一:园林绿化中大规模应用的橙红、大花类型多为原产印度、斯里兰卡及中南半岛的小叶龙船花,在中国属引种栽培;《中国植物志》所载龙船花在广东、海南、广西、云南等地有野生分布。但是在我国台湾省,唇形科大青属赪桐也被称作“龙船花”,极易造成混淆。 入侵植物在城市功能单元中出现频率普遍较低,但地毯草出现于28.41%的城市功能单元中,属明显例外。 城市之间,总物种库呈现较高重叠。主成分分析排序与层次聚类显示,海南多数城市栽培植物组成高度重叠:前两个主成分分析轴仅解释30.28%的总变异(主成分分析1为16.64%,主成分分析2为13.64%);海口和儋州沿主成分分析1轴与其他城市明显分离,三亚和临高沿主成分分析2轴分化。层次聚类将11个城市分为三支--临高单列,儋州与海口聚为一支,其余8个城市聚为一支。趋同可能源于相似的绿化理念、苗木供应体系与对外来观赏植物的偏好;海口与儋州的分离,则可能与其城市规模较大、城市化水平较高有关。 β多样性分解显示,省级尺度上城市功能单元平均物种丰富度(α)为14.21种,平均Jaccard相异度为0.94。 这个数字需要谨慎解读。由于单个城市功能单元平均仅记录十余种,而全岛物种库达924种,α远小于γ,Jaccard相异度在数学上必然处于高位。因此,0.94不宜直接读作“地块之间差异极大”,它更多是小取样单元、大物种库背景下的统计量。判断同质化的关键,是它随管理强度等因素发生的变化幅度,而非其绝对水平。 城市尺度上,γ多样性从119种(临高)到504种(儋州)不等,α多样性从4.40种/城市功能单元(临高)到32.73种/城市功能单元(保亭)不等,各城市平均Jaccard相异度保持在0.92-0.96的高位。 分类学和系统发育β多样性主要由周转驱动,即物种或谱系替换是主要来源;功能β多样性中周转与嵌套均有贡献,说明功能差异既来自性状替换,也来自功能空间大小的差异。本土植物通常具有更高的分类学和功能周转,外来植物对系统发育β多样性和周转的贡献更大。 关联一致,但解释力有限 线性混合效应模型显示,所有主模型显著,边际R2为0.05-0.23,条件R2为0.09-0.40。边际R2是固定因素(即自然与人为变量)解释的比例,条件R2是纳入城市随机效应后的总解释比例。这意味着:控制城市间差异后,所有变量合计仅解释β多样性变异的5%-23%;加入城市随机效应后升至9%-40%,说明城市间差异本身才是最大的方差来源。 人为变量中,浇水、施肥、修剪频率以及城市功能单元类型、房价和城市面积在多个模型中显著。其中,绿化管理变量的关联最为一致:浇水、施肥和修剪频率通常与β多样性负相关。由于β多样性以Jaccard相异度衡量,负相关意味着管理强度较高的区域,城市功能单元间的物种组成、系统发育结构和功能性状差异相对较小,群落趋于同质化。城市功能单元类型亦显著,反映不同功能单元的绿化目标与植物配置不同。
王华锋(左一)指导巴基斯坦留学生Hamza(右一)和姜栋柱博士进行实验。 研究人员指出,自然变量中,年均温、经度、年均风速和纬度仅在部分模型显著,说明气候与地理梯度的影响依情境而定。 偏dbRDA在控制城市后,城市功能单元水平预测变量与总体、本土和外来栽培植物群落组成均显著相关,但模型整体解释力很低,R2分别仅为1.9%、1.7%和1.8%——超过98%的变异仍无法被这些局部因素解释。 本土与外来植物响应不同:本土β多样性与绿化管理、城市功能单元类型关联更强;外来β多样性与城市功能单元类型、绿化管理、经度和年均风速关联。总体上,城市功能单元类型和浇水频率是最一致的关联因素,但各变量的边际解释力普遍很低,说明控制城市间差异后,单个局部因素的独立效应有限。 论文共同通讯作者高志文指出,两点提醒对读者理解该结论至关重要。其一,团队给出的是统计关联,反向因果与未测变量均无法排除,也可能存在“本来就种植单一的地块更便于高频养护”的情形。其二,公开信息中未给出高、低管理强度组之间β多样性的实际差值(效应量),因此“越勤越像”的实际幅度尚无法判断。 此外,β多样性下降与α多样性上升并不矛盾:精细养护可以让单个地块物种更丰富,同时让地块之间彼此更相似。团队前期对儋州135个城市功能单元的研究即发现,浇水、施肥等措施有助于提升城市绿地物种丰富度。两个维度指向不同问题,不宜将本研究的结论简化为“少浇水、少施肥更好”。 稳健性检验支持上述格局。置换多元方差分析显示,分类学、系统发育和功能β多样性在城市间均差异显著;置换多元离散度分析进一步表明,三个维度的城市间多元离散度也显著不同,说明城市间差异既反映群落质心位置不同,也反映城市内群落异质性变化。基于S?rensen相异矩阵的分析格局一致。 热带城市绿化如何留住多样性? 该研究于2025年7月投稿、2026年9月被接受并于10月9日发表,经历两轮较大幅度修改,先后有10位审稿人参与评审。这个过程从一个侧面说明,城市植物多样性研究远非简单的线性问题。 结果表明,人为因素特别是绿化管理,与栽培植物β多样性表现出比自然因素更一致的关联,且多数管理变量与β多样性负相关——标准化的浇水、施肥和修剪,与城市功能单元间分类学、系统发育和功能差异的降低相关联。 “这可能与海南的特殊环境有关:贫瘠的沙质土壤和频繁的台风干扰,使城市植被尤其是外来植物高度依赖持续的人为管理。”王华锋指出,对尚未完全适应本地条件的外来栽培植物,稳定的水分和养分供应尤其重要。人为输入与有意引种、种植设计一起,可能部分解释这些物种在各城市间的广泛出现。 本土栽培植物虽更适应本地环境,但仍受修剪、补植等维护措施影响,这些措施维持了观赏形态和空间结构;持续的人为干扰可能影响演替动态,使相似的种植配置得以长期维持。值得注意的是,管理效应不限于分类学组成,系统发育和功能β多样性的同步降低表明,集约化维护与城市功能单元间更相似的观赏谱系和性状组合相关联,这与多维生物同质化模式一致。 城市功能单元类型在塑造本土和外来栽培植物β多样性方面呈现对比格局。模型中,公共服务区、交通区、休闲娱乐区和居住区与本土栽培植物分类学β多样性的关联为负,提示这些类型之间本土植物组成相似度更高,可能反映标准化、有序、低维护的种植方案。相反,休闲娱乐区与外来植物系统发育β多样性的关联为正。休闲空间通常允许更大的设计灵活性,强调视觉吸引力、季节变化和结构复杂性,往往引入来自不同地理起源和进化谱系的外来观赏植物。 研究提示,城市绿化与养护管理可针对不同城市功能单元类型的功能和生态特征差异化设计:交通区受空间、安全和维护要求限制,可优先选用耐胁迫、低维护的本土物种;居住区和休闲娱乐区允许更大的种植设计灵活性,更适合近自然的方法。外来物种的使用需综合功能需求、维护能力与长期生物安全风险;对已知或潜在具有入侵风险的物种,建议从源头限制,并在可能情况下以本土或其他低风险替代品替换。 “城市植物多样性的驱动机制远比想象复杂。”王华锋自2008年调查北京五环城市植物和土壤算起,已在这一领域坚持18年。在他看来,多样化种植、更多本土物种组合、审慎筛选外来观赏植物,有助于让城市绿化不只是“看起来一样绿”,而是真正留住生态差异与韧性。