人脑新型神经元
1)评论 2)原始论文 Trends in Neurosciences, August 2026, Vol. 49, No. 8,603-605 焦点 更大的大脑增加了新型神经元:人类新皮层纺锤体神经元的分子和功能特征 Karri Lamsaand Viktor Szegedi 尽管哺乳动物大脑共享共同的结构蓝图,但扩展的新皮层包含小型大脑中不存在的特化神经元类型。利用人神经外科手术组织,Ke及其同事结合多模态分析,确立了纺锤体神经元(spindle neurons)作为一个分子上独特且功能上特化的皮层细胞群体。他们的发现强调了大脑进化如何通过不仅仅是增加神经元数量来增加回路复杂性。 哺乳动物大脑共享保守的结构组织和生理特征,这支持了广泛使用非人物种作为脑研究的实验模型。这种保守性延伸至神经元类别,主要神经元类型由共享的分子标记物定义,并形成典型的皮层回路(canonical cortical circuits)[1]。然而,对新皮层(neocortex)(高级认知功能的基质)的比较研究揭示了细胞组成和回路组织方面的物种差异[2]。这些差异超越了保守细胞类型内的分子变异,包括物种特化的神经元类型[1,3,4]。 在进化过程中,大型脑哺乳动物(如灵长类)新皮层的扩张对神经回路提出了新的要求,要求它们跨越大距离运行并协调日益增多的神经元之间的活动。这些大规模变化伴随着细胞适应,包括出现小型脑哺乳动物中不存在的新型特化神经元类型[2,5]。这些神经元表现出独特的结构、分子和功能特性,可能促进跨扩展皮层网络的有效通信和信息处理[6]。重要的是,跨物种转录组相似性表明,这些神经元类型是通过保守细胞类的多样化而非从头(de novo)发明产生的[1,7]。尽管存在物种特异性神经元的解剖学证据,但其分子和电生理特性仍然知之甚少,这主要是由于获取大型哺乳动物活体脑组织的途径有限。人类患者的神经外科切除组织为克服这一限制提供了宝贵机会[8]。 纺锤体神经元(Spindle neurons,SPNs),也称为von Economo神经元,长期以来因其独特的形态而在人类和其他大型脑哺乳动物的新皮层中被解剖学上识别(综述见[9])。然而,其分子和功能身份仍未完全明了。在最近的一项研究中,Ke、Lyu、Jin、Jiao等人(以下简称Ke及其同事)使用人神经外科手术组织制备的急性新皮层切片,对SPNs进行了多模态表征[10]。结合全细胞电生理学、形态重建和单细胞转录组学,作者将SPNs与邻近的锥体神经元群体(pyramidal neuron populations)进行了比较,包括端脑外投射(extratelencephalic,ET)、端脑内投射(intratelencephalic,IT)和三角形神经元(triangular neurons)。他们的研究结果表明,SPNs代表了一个独特的神经元群体,不仅由形态定义,而且具有特征性的转录组特征。 在形态上,SPNs表现出双极树突组织,具有从胞体两极延伸的一根顶树突和一根基树突,不同于以单根顶树突为主的典型锥体神经元形态。其顶树突比第5层锥体神经元的复杂度低,分支更少,长度更短。一个决定性特征是轴突始终从基树突干而非胞体发出,这使SPNs区别于大多数锥体神经元,并可能促成其独特的动作电位波形,包括较慢的胞体上升支。在Ke及其同事的研究中,SPNs存在于额叶和颞叶皮层(frontal and temporal cortices),但未在顶叶(parietal)样本中发现[10]。虽然先前被认为局限于第5层,该研究还报道了SPNs存在于第4层,表明其层状分布更广。SPNs似乎稀少但局部聚集而非均匀分布。它们在联合皮层区域的富集,连同SPNs在神经精神和神经退行性疾病中易损性的证据,突显了它们在认知过程中潜在的功能重要性(参考文献见[10])。 在分子水平上,SPNs被发现有独特的转录组类别,可与ET和IT锥体神经元以及三角形神经元区分开[10]。虽然没有单个基因能唯一定义SPNs,但ADRA1A和SULF2等基因的表达富集,可辅助其识别。SPNs显示与突触信号传导和能量代谢相关基因的表达降低,表明其功能特性独特。值得注意的是,SPNs并非同质。转录组分析揭示了两个亚群:一个更接近ET锥体神经元,另一个与IT神经元更接近。这表明SPN类型跨越了常见的L5兴奋性谷氨酸能神经元谱系,产生了ET样和IT样SPN亚型。 在电生理学上,SPNs与ET锥体神经元共享基本的放电特性,但表现出更高的内在兴奋性,包括更低的基强度和更强的簇状放电倾向[10]。虽然SPNs的放电模式并非严格的细胞类型特异性,但这些神经元独特的形态——特别是树突轴突起源——可能塑造了动作电位的起始和传播。 尽管SPNs的精确功能仍未解决,但它们在大型脑物种中的富集以及与高级皮层区域的关联表明其在协调分布式神经网络活动中的作用。这种特化可能支持灵长类和其他大型脑哺乳动物(包括鲸类和象)的高级认知过程(参考文献见[10])。总的来说,Ke及其同事的发现进一步支持了这样一种观点,即新皮层扩张不仅涉及神经元数量的增加,还包括功能和结构特化细胞类型的贡献。图1总结了先前文献中确立并经Ke及其同事细化的SPNs关键形态学、分子和功能特征。 需要进一步的工作来定义有助于哺乳动物大脑功能(包括认知)的神经元特化。同样重要的是理解这些人类富集的细胞类型如何参与神经和精神疾病,并利用这些知识来开发更有效的疗法。Ke及其同事的研究通过识别关键的SPN相关基因,为在器官型模型中对这些神经元进行靶向操作和功能探究提供了分子切入点,标志着朝着这些目标迈出了重要一步。 图注
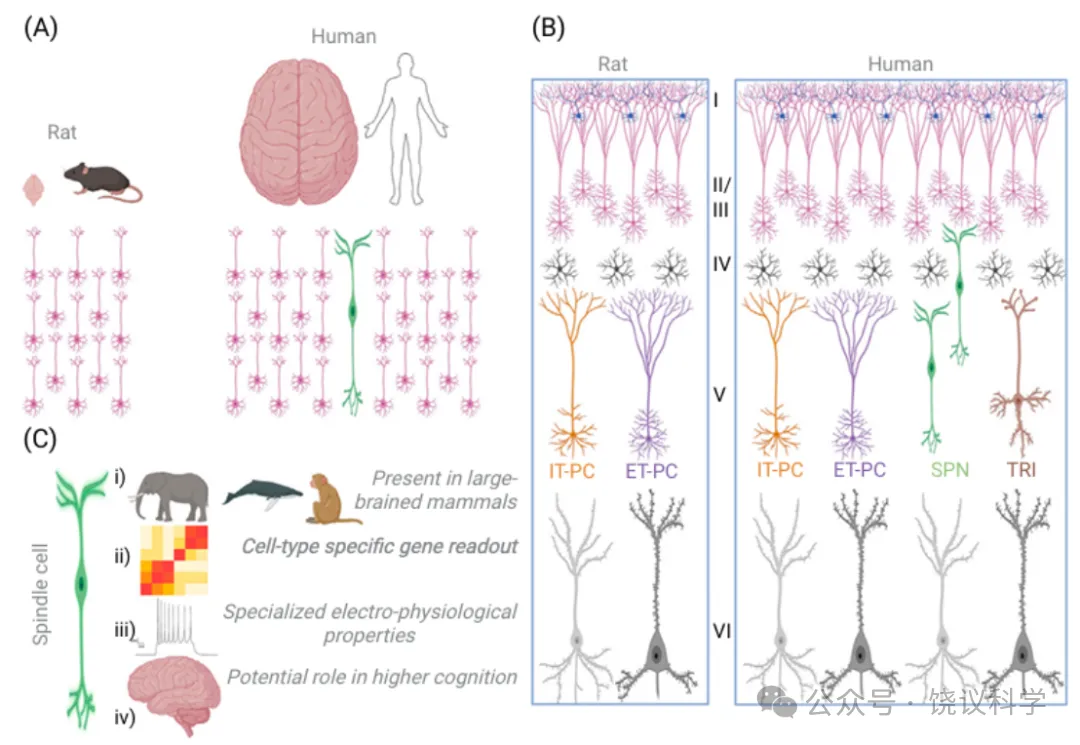
图1. 新皮层扩张与灵长类纺锤体神经元的出现。 (A) 在哺乳动物中,新皮层扩张既反映了神经元数量的增加,也反映了特化神经元类型的出现。大型脑物种(例如人类)表现出啮齿动物(例如大鼠)中不存在的额外细胞类型。 (B) 大鼠和人类新皮层的比较。核心层状组织和主要锥体神经元类别——端脑内投射(IT-PC)神经元和端脑外投射(ET-PC)神经元——是保守的。在人类中,第5层包含额外的特化神经元,包括纺锤体神经元(SPNs)和三角形神经元(TRIs)。SPNs最近也被观察到存在于第4层[10],扩展了其已知的层状分布。第6层包含跨物种多样的锥体神经元。在插图中,层厚度为示意图,不反映物种特异性比例。(C) SPNs的关键特征。(I) SPNs在大型脑哺乳动物中富集。(II) 它们表现出独特的梭形形态,具有双极树突和从基树突发出的轴突。它们还具有由特定基因表达特征定义的独特分子身份[10]。(III) 在功能上,SPNs表现出更高的内在兴奋性[10]。(IV) 总之,这些特性表明SPNs代表了支持扩展皮层网络中信息处理的专门化回路元件。此图使用BioRender(非生成式AI辅助设计)创建。
原始论文 Nature Communications | (2026) 17:6330,P1-17 人类皮层纺锤体神经元具有独特的放电特性和转录组特征 Wei Ke, Shuxuan Lyu, Mengmeng Jin, Shaoqing Jiao, Liang Li,Heyuan Zhang,Kexin Ling, Cuiping Tian, Yiquan Song, Liu Chen, Quansheng He, Yujie Xiao, Suixin Deng, Liu Fan, Huawei Mu, Hui Yang ,Hua-Tai Xu , Hao Wang , Ai-Hui Tang , Jiajie Peng , Jie He ,Hui Guo & Yousheng Shu 摘要 纺锤体神经元(Spindle neurons,SPNs),也称为von Economo神经元(VENs),主要存在于包括人类在内的大脑较大的物种中。人类新皮层中的SPNs被认为与认知功能相关,并受多种脑部疾病的影响。尽管其形态独特,但SPNs是否具有独特的电生理特性和转录组身份仍不清楚。在本研究中,我们对人脑切片中经视觉鉴定的SPNs和锥体细胞(pyramidal cells,PCs)进行了全细胞膜片钳记录(134个细胞)以及RNA测序(patch-seq,124个细胞)。与推测的端脑外投射型PCs相比,SPNs的近端顶树突复杂度较低,且轴突发自基树突干。此外,它们表现出更高的兴奋性和特征性的放电特性,包括强力的簇状放电和持续性放电模式。Patch-seq分析揭示了SPNs内部的转录组异质性,并鉴定了它们的特征基因。综上所述,我们的结果表明SPNs形成了一个分子和功能上独特的神经元群体,可能作为人类皮层处理的专门化神经基质。 引言 神经解剖学研究已在人类大脑皮层中鉴定出形态独特的细胞类型,其中纺锤体神经元(SPNs),也称为von Economo神经元(VENs),因其巨大的梭形胞体而尤为突出。与通常拥有一条粗顶树突的邻近锥体细胞(PCs)不同,SPNs拥有两条对称的粗树突干(一条上行/顶树突和一条下行/基树突),从胞体的两极逐渐变细。先前的研究揭示,SPNs选择性地存在于大脑较大的物种中,包括人类、大型类人猿、大象和一些鲸类,它们可能在高级认知和社会功能中发挥作用。这些神经元主要定位于前扣带回皮层(anterior cingulate cortex,ACC)、岛叶前部皮层(frontoinsular cortex,FI)和背外侧前额叶皮层(dorsolateral prefrontal cortex,dlPFC)的第5层(L5),并且常呈聚集而非均匀分布。解剖学观察表明,SPNs的丢失与多种神经精神和神经退行性疾病密切相关,包括自闭症、额颞叶痴呆(frontotemporal dementia,FTD)、肌萎缩侧索硬化症(amyotrophic lateral sclerosis,ALS)和阿尔茨海默病。SPNs在脑区特异性富集及其在脑疾病中的选择性易损性,强调了其作为正常认知功能和病理状态下关键细胞类型的重要性。然而,除了独特的形态外,SPNs是否表现出独特的电生理特性和转录组特征,目前仍知之甚少。 由于获取新鲜人脑组织(特别是SPNs密度较高的区域如FI和ACC)的途径有限,关于SPNs内在膜特性和放电活动的研究极少。不过,最近一项研究成功记录了患者肿瘤周围岛叶皮层中的三个推测SPNs。需要更多记录来系统阐明SPNs的电生理特性。在额叶和颞叶皮层中识别推测的SPNs为研究提供了有前景的机会,因为这些区域在治疗顽固性癫痫的神经外科手术中经常被靶向。 通过原位杂交(in situ hybridization,ISH)和微解剖细胞RNA测序对冻存死后人脑组织的研究,先前研究已鉴定出SPNs的几个分子标记物,如ADRAIA、GABRQ、SULF2和VATIL。近年来,单细胞RNA测序(scRNA-seq)利用已鉴定的标记物,能够跨不同皮层区域和物种识别推测的SPNs。跨物种分析进一步揭示了包含SPN簇的灵长类共享和人类特异性标记基因,如PCSK6、ADAMTSL3和CDHR32。整合跨脑区和跨物种的scRNA-seq数据集的努力,揭示了基于充分表征的小鼠细胞类型的人类神经元潜在功能,并将来自人类FI和颞中回(middle temporal gyrus,MTG)的SPNs鉴定为L5端脑外投射PCs(extratelencephalic-projecting PCs,ET-PCs)的一个亚群,这与早期逆行示踪实验的发现一致。鉴于先前鉴定的标记基因并非由SPNs独家表达,也存在于L5 ET-PCs中,使用这些标记物识别的转录组簇可能代表L5 ET-PCs而非SPNs。因此,尽管与ET-PCs共享标记基因,SPNs是否代表转录组和功能上独特的细胞类型仍未解决。 在本研究中,我们利用神经外科手术中获得的新鲜人脑组织,采用形态重建、电生理学和patch-seq相结合的多模态方法,来界定SPNs和ET-PCs之间的差异。我们发现,与ET-PCs不同,SPNs的近端顶树突复杂度较低,且轴突发自粗大的基树突干而非胞体。令人惊讶的是,SPNs表现出增强的神经元兴奋性和特征性的放电模式,包括对短暂基强度刺激的延长持续性放电活动。除了与ET-PCs共享的标记物外,SPNs还显示出大量的差异表达基因(differentially expressed genes,DEGs)。此外,转录组分析揭示了SPN群体内的异质性,揭示了两个与端脑内投射(intratelencephalic,IT)-或ET-PCs特征更一致的亚型。总的来说,这些发现确立了人类SPNs作为一个功能和分子特化的神经元群体,具有独特的电生理和转录组特征。 结果 急性脑切片中人SPNs的识别 我们从神经外科手术中获取新鲜人脑组织,主要来自28名顽固性癫痫患者(n = 27),以及另外1例脑出血样本。样本取自颞叶(n = 16)、额叶(n = 9)和顶叶(n = 3)(图1a,见“方法”)。在病灶周围区域制备的急性脑切片中,我们根据其树突形态,在微分干涉相差(DIC)显微镜下识别SPNs(图1b)。与先前观察一致,这些神经元呈现出延长的梭形胞体,并具有从两极发出的单根顶树突和基树突(图1b)。SPNs在2个额叶皮层样本和9个颞叶皮层样本中被识别,但在顶叶皮层中未观察到(补充图1a)。SPNs相对罕见(颞叶皮层,每立方毫米1.75 ± 0.50个神经元),但倾向于聚集在曲率相对较高的脑回嵴处(crests of cortical gyri)(补充视频1和2)。为了进行比较分析,我们还靶向了邻近的推测端脑外投射型PCs(extratelencephalic-projecting PCs,ET-like PCs),其特征为大的锥体胞体和粗顶树突。我们经常遇到神经元簇,其初级基树突以相对于顶树突干不同角度(90° - 180°)从胞体发出(图1b)。这些神经元先前容易被误认为是SPNs,最近被表征为三角形细胞(triangular cells,TRIs)。因此,我们也靶向了这些TRIs及其邻近的推测端脑内投射PCs(intratelencephalic-projection PCs,IT-like PCs),其胞体比ET-like PCs小。NeuN免疫染色证实,SPNs具有延长的胞体,与TRIs和L5 PCs不同,而ET-like PCs具有最大的胞体体积(图1b)。 基于NeuN标记神经元密度描绘的皮层分层结构,我们进一步研究了靶向细胞的层状分布(图1c-e)。我们样本中的TRIs主要位于深层第5层(L5),靠近L5/L6边界,与先前研究一致。值得注意的是,我们的结果意外揭示了SPNs同时存在于L4和L5(图1c-e和补充图1b-d),这与先前在FI和ACC中SPNs聚集在深层L5的发现相反。在SPNs附近,我们偶尔观察到具有两条顶树突的叉形细胞(图1d和补充视频1)。这些发现表明SPNs在人脑皮层内的层状分布存在区域特异性差异。SMI-32(一种ET-PCs的神经丝标记物)免疫染色同时标记了SPNs和邻近的ET-like PCs,但未标记TRIs及其附近深层L5的IT-like PCs(图1d)。 为了进一步验证靶向SPNs的身份,我们使用先前鉴定的标记物ADRAIA、SULF2和MEIS2的探针,对人脑切片进行了多重荧光原位杂交(FISH)。根据SLC17A7(泛谷氨酸能神经元标记物)信号勾勒的胞体形状,可以将SPNs与PCs区分开来。与先前研究一致,ADRAIA和SULF2在SPNs和ET-PCs中均高表达,而MEIS2在两种细胞类型中也显示中等表达(图1f)。我们严格遵循细胞选择过程中的形态学和层状分布标准,从这些靶向细胞类型收集了多模态数据。然后对这四种细胞群体进行了全面的形态学、电生理学和转录组学分析(图1g)。简言之,我们进行了全细胞记录以评估电生理特性,包括对阶跃电流的放电反应(n = 134个神经元)。记录期间用生物胞素填充神经元,用于离体亲和素染色和3D形态重建(n = 63个神经元)。在一部分实验中,通过记录电极抽吸胞质内容物,并使用改良的Smart-seq2方案进行转录组学分析(n = 124个神经元,见“方法”)。 SPNs呈现总体ET样电生理特性但形态不同 我们分析了记录神经元的形态学和电生理学特征。亲和素染色能够可视化记录细胞的胞体以及树突/轴突分支(图2a,b和补充图2、3)。树突域的形态计量学量化证实,SPNs形成了一个与ET-like PCs不同的离散簇(补充图2)。为确保基树突完整性以便进行ET-like PCs和SPNs之间的形态比较,远端的顶树突丛(距胞体数毫米)在切片过程中通常被截断(见“方法”)。在顶树突相对完整的SPNs亚群中,所有神经元均在L1形成树突丛(补充图3f)。Sholl和Horton-Strahler分析显示,SPNs的近端顶树突明显比邻近ET-like PCs的复杂度低,表现为分支点更少、树突交叉减少和总树突长度更短(图2c-e)。对于其延长的基树突干,SPNs在近端(距胞体100 μm内)交叉较少,同时总树突长度和分支点数与ET-like PCs相当(图2c-e)。相比之下,SPNs在轴突分支方面仅显示出微小差异。 Sholl分析显示,TRIs在树突和轴突分支的复杂性方面也与邻近的IT-like PCs不同(补充图3a-c)。TRIs在锥体形胞体和基树突干之间有明显的分界,而SPNs缺乏这种清晰的边界。尽管轴突在部分PCs(n = 4/19)和TRIs(n = 7/18)中起源于树突,但SPNs的一个显著特征是其轴突始终从粗大的基树突干发出(n = 32/32),这使它们区别于TRIs和PCs(补充图3f)。 为阐明SPNs、TRIs及其邻近PCs的电生理特性,我们在电流钳模式下进行了全细胞记录。从单动作电位(APs)和阶跃电流注入的放电反应中提取电生理参数(图3和补充图3d,另见“方法”)。使用无监督层次聚类,我们基于一组全面的特征将记录的神经元分为四种不同的电生理类型(e-type),从e-type1到4(图3a)。TRIs及其邻近的IT-like PCs表现出的放电特性(补充图3d,e)与先前报道的人IT-PCs相似,并被归类为e-type1。其余三种类型e-type2-4几乎完全由ET-like PCs和SPNs组成。值得注意的是,SPN群体主要分布在e-type3(40.0%,n = 18/45)和e-type4(51.1%,n = 23/45),而很少出现在e-type1(2.2%,n = 1/45)和e-type2(6.7%,n = 3/45)(图3b-d)。在我们的实验中,我们发现较长的组织运输时间(从手术室到切片台)不会显著影响大多数电生理特征,但确实影响AP上升支斜率和后超极化(after-hyperpolarization,AHP)。令我们惊讶的是,我们还发现年龄与AP动力学之间存在密切相关性(补充图4)。由于样本量有限,我们汇总了数据并进行以下分析。 相关性分析显示,包含SPNs的e-type3和e-type4簇形成了一个密切相关的功能组。这种相似性意味着一个共享的电生理特征,将e-type3/4与e-type1和2区分开来(图3e)。比较分析揭示了四种类型之间明显的生理区别(图3f-h),与先前在人类和啮齿动物中的发现一致。 例如,e-type2–4型神经元的sag比值高于e-type1型神经元,表明ET样浦肯野细胞中HCN通道表达水平较高(图3h)。e-type2型神经元的输入电阻最低(图3h),这与先前表征的人类L5 ET-PC的特性相符。值得注意的是,含有SPN的e-type3/4型神经元表现出既往新皮质PCs中未曾描述的电生理特征。具体而言,它们在基强度刺激下产生延长的AP簇状放电(e-type3:12.9 ± 0.9个,e-type4:15.6 ± 1.4个AP),且具有较高的瞬时频率(e-type3:126.9 ± 5.3 Hz,e-type4:81.2 ± 4.9 Hz),并对弱输入表现出增强的兴奋性(图3f和补充图5)。它们还表现出独特的固有膜特性和主动膜特性,这可能有助于其增强的兴奋性(图3c–f)。 SPN具有独特的动作电位波形和放电模式 在我们数据集中,SPN的形态学标志不仅包括细长延长的胞体树突区室,还包括一条起源于基树突且距胞体质心相对较远的轴突(称为轴突-胞体距离,范围为28.4至152.8 µm,n = 36;图4a、b)。这一特征与先前高尔基染色观察结果一致。鉴于神经元兴奋性与胞体树突几何形态及轴突起源密切相关,我们假设SPN独特的形态可能因其特殊的电学区室化和轴向电阻而显著影响动作电位的起始和反向传播。为验证这一假说,我们比较了SPN与锥体细胞之间的兴奋性和放电特性。考虑到含有SPN的e-type3/4细胞在聚类和相关分析中表现出相似性(图3a、e),我们选择e-type3/4中的ET样锥体细胞作为SPN的对照组。我们发现L4和L5b SPN的电生理特征相当(补充图6),但作为一个群体,SPN在电生理特性上与ET样锥体细胞存在显著差异。具体而言,SPN的基强度电流显著更低,动作电位时程更长(图4c–e)。这种增强的兴奋性可能源于其更高的输入电阻,以及下文将描述的突快去极化坪电位。 大多数e-type3/4锥体细胞在相图(即AP的一阶导数dV/dt)的上升期表现出明显的拐点,并且在二阶导数(d²V/dt²)图中出现两个分离的峰值(n = 20/31,图4f)。相比之下,大多数SPN在相图中缺乏可辨别的拐点(n = 35/41),并且相图的起始斜率更慢(图4g)。 部分SPN和锥体细胞还表现出明显更慢的上升支(SPN n = 11/31,锥体细胞 n = 16/41,图4f和补充图7)。动作电位的双相特性源于轴突起始段电位(即AIS处AP起始引起的胞体去极化)与胞体树突电位(即树突胞体Na⁺通道激活引起的胞体AP生成)在时间上的分离。大多数SPN中明显缺乏这种双相拐点,可能归因于AIS电位和胞体树突电位的严重降低,这很可能是由于沿梭形胞体传播过程中的被动衰减所致。 进一步分析显示,AP参数与轴突-胞体距离之间无显著相关性(图4h和补充图7c),表明SPN粗大的基树突干与相对较细的携带轴突的树突不同,后者AP电压阈值与轴突起源距离呈负相关。与ET-like PCs相比,SPNs具有更高的输入电阻(Rin)和较低细胞电容(Cm)的趋势(图4c),这有助于在SPNs的基强度电流下观察到的高兴奋性(补充图7d,e)。总的来说,SPNs表现出独特的AP起始和反向传播动力学,这可能由其独特的树突形态所塑造。 引人注目的是,除了AP起始和反向传播的独特特征外,一部分SPNs表现出持续的AP放电,骑跨在延长的去极化平台期上,该平台期持续远超刺激期(n = 17/51,图4i,j)。这种现象在e-type3/4 ET-like PCs中观察到的频率要低得多(n = 3/45,补充图8)。值得注意的是,表现出持续性放电的神经元主要聚集在e-type4内(n = 18/20),并且与e-type3神经元的不同之处在于其持续性活动基础下的显著去极化平台期(补充图8)。SPNs中伴随延长去极化平台期的持续性簇状放电在全细胞记录模式建立成功后不久即消失(平均时间窗口为103.8 ± 11.8秒,n = 14个SPNs)(图4i),表明细胞内信号通路在维持该活动中起作用。 相比之下,仅限于刺激期的瞬时簇状放电在SPNs和e-type3/4 PCs中均观察到(图4d)。先前在啮齿动物中的研究表明,远端顶树突去极化可以诱发局部树突峰电位并传播至胞体,在L5 PCs中诱导簇状放电。在SPNs和e-type3/4 PCs中,体细胞基强度电流注入均可轻易诱导簇状放电。此外,在细胞贴附式和全细胞记录模式下,两种细胞类型均出现类似于诱发簇状放电的自发簇状放电(SPN n = 7/51;e-type3/4 PC n = 22/45;图4k)。在e-type3/4 PCs中,AP簇状放电的产生依赖于膜电位(Vm)水平。Vm去极化消除但延长超极化促进簇状放电(n = 5,图4l),提示低阈值T型钙通道的参与。这些结果与人类L5 ET-PCs中CACNA1H(编码Cav3.2)相比于其他皮层细胞类型和物种的上调一致。值得注意的是,在e-type3/4 PCs和SPNs中均发生的瞬时簇状放电,在整个记录过程中(超过250秒)保持稳定,远长于持续性放电的时间窗口。这表明瞬时和持续性簇状放电可能受不同机制调控。 事实上,我们发现SPNs在对基强度电流注入的反应中表现出显著更大的亚阈值去极化平台期(图4m,n),表明低阈值内向电流可能对其增强的兴奋性和持续性活动倾向有潜在贡献。总之,这些发现表明,虽然SPNs和e-type3/4 PCs都能产生自发簇状放电和持续性放电,但SPNs表现出延长的超线性去极化平台期,这可能构成其高发性持续性放电的基础。 SPNs在转录组上属于IT/ET簇 先前的单核RNA测序(snRNA-seq)研究表明,基于已鉴定标记基因的表达,SPNs在转录组上与L5 ET-PCs聚类。使用RNAScope结合形态染色的验证实验显示,这些标记基因不仅标记SPNs,也标记邻近的PCs,表明其细胞类型特异性有限。此外,现有脑组织snRNA-seq数据中L5 ET-PCs的采样量有限,导致难以精细区分SPNs和ET-PCs,使得SPNs转录组身份的界定仍是一个悬而未决的问题。为解决这一问题,我们采用patch-seq从单个神经元收集转录组数据,并精确表征SPNs、PCs和TRIs之间的分子差异(图5和补充数据1)。在全细胞记录之后,将记录的神经元吸入装有裂解缓冲液的记录电极中,并使用改良的SMART-seq2方案进行处理(见方法)。在某些情况下,在形成全细胞记录构型之前直接抽吸细胞体。为减轻采样过程中邻近细胞碎片的潜在RNA污染,我们基于PC“ON”和“OFF”标记基因计算每个样本的污染评分,从而对patch-seq数据集进行严格的质量控制(见“方法”;补充图9a)。 我们总共获得了124个高质量的单细胞转录组,包括来自颞叶、额叶和顶叶皮层的64个PCs和38个TRIs,以及仅来自颞叶和额叶皮层的22个SPNs。基于高变基因(highly variable genes,HVGs)的主成分分析(principal component analysis,PCA)和统一流形逼近与投影(uniform manifold approximation and projection,UMAP)鉴定出两个不同,的转录组簇,命名为t-type1和t-type2。这些簇在很大程度上独立于皮层区域(图5a)。当与形态类型(m-type)对齐时,虽然大多数SPNs(72.7%,n = 16/22)聚集在t-type2中,但一小部分(27.3%,n = 6/22)与t-type1聚集在一起,表明SPN群体内存在转录组异质性(图5a)。此外,电生理类型(e-type)与这些转录组身份显示出强烈的对应关系:绝大多数e-type2-4细胞映射到t-type2,而所有e-type1细胞都聚集在t-type1内(图5a)。应用“min.pct = 1”和“log2 fold change > 1”的阈值,我们在两个簇之间鉴定了128个差异表达基因(differentially expressed genes,DEGs),其中34个基因在t-type1中上调,94个在t-type2神经元中上调(图5b和补充数据2)。基因本体论(Gene ontology,GO)富集分析显示这些DEGs主要与离子通道活性和神经元放电模式相关的生物学过程有关(图5c)。类似地,基因与基因组京都百科全书(Kyoto Encyclopedia of Genes and Genomes,KEGG)分析显示钙信号传导和轴突导向通路显著富集(补充图9b)。与功能注释一致,已知的IT-和ET-PCs标记基因在t-type1和t-type2细胞中差异表达(图5d)。在DEGs中,离子通道表现出与观察到的e-types一致的表达模式(图5e)。例如,调节AHP和高频放电的钙激活钾通道(KCNN2,编码KCa2.2)在e-type2神经元中最富集。包含SPNs的e-type3/4细胞表现出CACNA1H(编码Cav3.2)的高表达,这可能构成其自发簇状放电的基础(图5e)。 鉴于一部分SPNs意外地聚集在与IT相关的t-type1中,我们通过将我们的patch-seq数据映射到人颞中回(middle temporal gyrus,MTG)细胞类型分类学来进一步验证转录组身份。使用自上而下的基于树的策略,44个细胞(包括13个SPNs)被分配到ET-PC簇“Exc L4-5 FEZF2 SCN4B”,其中大多数来自我们基于HVG聚类的t-type2(图5f,g)。其余80个细胞(包括9个SPNs、所有TRIs和33个深层PCs)被映射到IT-PC簇,主要来自t-type1。值得注意的是,与SPNs存在于t-type1中一致,9/22个SPNs被分配到IT-PCs转录组簇(图5f,g),表明一部分SPNs在分子水平上偏离了典型的ET-PCs。为进一步证实这一发现,我们应用了另外两种映射算法,包括基于Seurat锚点和基于神经网络的策略。尽管主要映射的IT簇从“Exc L5-6 THEMIS CIQL3”变为“Exc L2-3 LINCOOS07 FREMS”,SPNs始终被映射到IT和ET两个簇中(补充图10)。 SPNs在转录组上不同于邻近的TRI/PCs 为进一步探索SPNs的转录组身份,我们将其基因表达谱与三个参考组进行了比较:非SPNs(即PCs和TRIs)以及转录组定义的IT-PCs(t-type1)和ET-PCs(t-type2)(图6)。与所有非SPNs相比,SPNs表现出89个DEGs,包括22个上调和67个下调基因(图6a和补充数据2)。值得注意的是,上调基因包括LYPDI,一个先前报道的SPNs标记物(图6a,d)。当与IT-PCs特异性比较时,DEGs包含许多典型的ET-PC、IT-PC和SPN标记物(图6b,e)。 这些结果表明,先前鉴定的SPN标记物可能反映了SPN包含的ET-PC和IT-PC簇之间的差异,而非SPNs的内在特征。有趣的是,与ET-PCs相比,SPNs显示出更多的DEGs(图6c,f),表明即使在ET谱系内,SPNs也具有独特的分子特征。在这些DEGs中,典型的ET-PC标记物SCN4B和SYT2表现出层级表达模式:它们在SPNs中的水平显著低于邻近的ET-PCs,但与IT-PC谱系相比,在SPNs中仍显著较高(图6b,c)。此外,山脊图显示SPN群体内几个基因(如GRIK2、NPTX1、POU3F1、ALDOC)的双峰表达分布(图6e,f),表明形态鉴定的SPNs之间存在转录组异质性。 为阐明SPNs和ET-PCs之间的生物学区别,我们使用鉴定的DEGs进行了GO和KEGG富集分析。尽管上调基因数量有限,但免疫相关生物学过程的富集(图6g)可能与SPNs在多种神经退行性疾病中的选择性易损性一致。SPNs中下调的基因主要与能量代谢和突触信号传导相关(图6h,i)。这些结果表明,SPNs具有与L5 ET-PCs不同的代谢和突触功能格局,这可能构成它们在人脑皮层回路中特化功能的基础。 SPNs的分子指纹 我们的聚类分析显示,SPNs分为两个亚组,22个SPNs中有6个被归类为t-type1,16个被归类为t-type2,以下分别称为IT-SPN和ET-SPN(图7a)。我们检查了先前报道的SPN标记物在这些亚型和我们的PC参考组中的表达。这些标记物在表达水平上表现出数量差异,而非存在或不存在的二元模式。例如,典型的SPN标记物如POU3F1、SULF2和ADRA1A在ET-SPNs和ET-PCs之间表达相当,但在IT-SPNs中相对较低(图7b)。 尽管两类SPN亚型共享一组核心已知标记基因,但它们具有不同的转录组谱,足以将其划分为不同的转录组类型(t-type)。IT-SPN与ET-SPN之间的差异基因表达分析分别鉴定出30个和143个标记基因(图7c和补充数据2)。IT-SPN显著富集非编码RNA(ncRNA),而ET-SPN则表现出蛋白编码基因(如CACNA1H)的表达升高(图7d)。为进一步探究SPN异质性与IT/ET身份之间的关系,我们基于高变基因(HVGs)进行了Spearman相关分析(图7e)。IT-SPN与IT型锥体细胞显示出更高的转录组相似性,而ET-SPN则与ET型锥体细胞高度一致。这一对应关系还通过已知IT和ET标记基因在两种SPN亚型中的表达模式得到了进一步证实 (图7f)。总体而言,这些发现支持SPN代表IT和ET细胞类型转录连续体的观点。 为进一步解析SPN与IT样、ET样锥体细胞之间的转录组差异,我们进行了高维加权基因共表达网络分析(hdWGCNA),以鉴定功能基因模块及其相关核心基因。该分析产生了17个共表达模块。网络可视化显示,核心基因主要由非编码RNA以及典型SPN标记物ADRA1A和SULF2组成(图7g和补充数据3)。尽管基因表达比较揭示了SPN与其他锥体细胞之间的显著差异,但SPN的分子基础仍不清楚。因此,我们采用特征选择算法(见方法部分)来鉴定一组能够将SPN作为转录独特群体区分出来的指纹基因集。该方法识别出38个基因,通过Ward层次聚类法使全部22个SPN和1个锥体细胞能够作为一个独立簇被分离出来(图7h)。这些基因分为三类:IT型锥体细胞富集基因、ET型锥体细胞富集基因,以及区分SPN与ET型锥体细胞的基因。值得注意的是,许多区分SPN与ET型锥体细胞的基因属于非编码RNA,提示SPN身份背后存在复杂的调控机制。尽管积累的研究致力于发现SPN的分子标记物,但我们的patch-seq数据表明,用单一标记基因来鉴定SPN是不可行的。然而,我们发现ADRA1A和SULF2这两个基因(图7g、h)很可能是SPN的关键标记物,因为它们既是hdWGCNA的核心基因,也是SPN的指纹基因。 讨论 我们的研究结果确定,独特的形态是在人脑切片中识别SPNs的最可靠标准。值得注意的是,我们发现颞叶皮层SPNs同时存在于L4和L5,将其已知分布扩展到FI和ACC中看到的L5b限制模式之外。电生理学分析将大多数SPNs置于e-type3/4簇中,其特征为强力的簇状放电和高兴奋性。有趣的是,SPNs表现出比其e-type3/4 PC对应物更高的兴奋性,其中一部分表现出延长的持续性放电并聚集在e-type4组中。这种增强的生理特征可能归因于SPNs固有的特化树突形态和高电致密性。尽管SPNs与ET-PCs共享分子标记物,但与L5 ET-PCs相比,它们表现出独特的转录组谱。此外,SPN群体内的转录组异质性分别与IT-或ET样特征一致,表明梭形可能反映了L5 PC谱系内的趋同结构适应(补充图2)。 与经典高尔基研究一致,我们的结果证实了SPNs独特的梭形胞体和分叉的基树突干。我们的结果进一步揭示,与邻近的ET-PCs相比,SPNs的近端顶树突复杂度较低。虽然先前的研究对SPN轴突起源部位存在分歧,但我们的生物胞素标记明确证明轴突发自粗大的初级基树突,而非胞体。这种解剖学构型表明,基树突突触输入对AP起始产生不成比例的影响。这种设计可能有利于有效的AP反向传播进入基树突树,支持脉冲时序依赖性可塑性,同时阻止AP侵入顶树突。总的来说,这些形态学特化表明SPNs和ET-PCs利用根本不同的策略进行突触整合。 基于AP参数的聚类鉴定了四种e-type,其中大多数SPNs(91.1%)聚集在e-type3/4中。与人类L5 PCs弱簇状放电的报道相反,我们以大体细胞和粗顶树突为特征的e-type3/4细胞在基强度下表现出强力的簇状放电(图4和补充图5)。这种差异可能反映了采样亚群的不同。早期报道弱放电特性的研究可能靶向了与我们的e-type2簇更相似的细胞。值得注意的是,e-type3/4群体中的SPNs表现出独特的AP起始和反向传播动力学,这可能由其特化的树突结构和远端轴突起源驱动。我们推测SPN轴突的基树突起源允许局部输入更有效地调节神经元输出,而其细长的形态可能补偿远端轴突增加的轴向电阻。 有趣的是,一部分SPNs在基强度电流注入后表现出持续数百毫秒的持续性放电。由于这种活动在全细胞记录中膜破裂后迅速消散,我们假设它是由细胞内信号级联介导的,可能由G蛋白偶联受体(如代谢型胆碱能或谷氨酸能受体)触发。在少数人类ET样PCs(n = 3/45)中观察到持续性放电表明,这种能力并非SPNs独有,但可能代表一种独特的细胞状态,类似于啮齿动物ET-PCs中D2R依赖的持续性活动。值得注意的是,这种现象不同于我们先前在灵长类GABA能中间神经元中鉴定的持续性Na+电流驱动活动。这不同于本文在人类SPNs中观察到的持续性放电。尽管我们的patch-seq数据将离子通道表达与这些e-type相关联(图5e),但确切的离子机制仍有待完全阐明。这种放电模式可能作为突触可塑性和神经元编码的特化基质,类似于啮齿动物CA1神经元中的平台电位。 先前的snRNA-seq研究表明,基于一组共享基因,SPNs属于L5 ET-PC簇(Exc L4-5 FEZF2 SCN4B)。然而,我们发现先前鉴定的标记物如ADRAIA、SULF2反映的是广泛的谱系差异而非SPN特异性身份。我们的patch-seq数据显示,与ET-PCs相比,SPNs相对于IT-PCs表现出更多的DEGs,表明SPNs不仅仅是ET-PCs的一个亚型。SPNs中下调的基因富集在与突触传递和代谢相关的通路中,进一步强调了它们与典型ET-PCs的功能差异。令人惊讶的是,虽然大多数SPNs聚集在t-type2中,但一部分被归类为t-type1。事实上,HVGs聚类和细胞类型映射结果均揭示了两种不同的SPN亚型,即IT-SPNs和ET-SPNs。这种分子异质性挑战了SPNs作为同质神经元类别的传统观点,并对其功能多样性和回路作用提出了新的问题。进一步分析区分了IT-SPNs和ET-SPNs,前者主要以非编码RNA富集为特征,而后者表达更广泛的蛋白质编码基因。值得注意的是,ET-SPNs显示出CACNA1H的高表达,这可能有助于其簇状放电模式。虽然这种异质性使通用SPN标记物的鉴定复杂化,但我们的特征选择方法确定了一个可靠分类SPNs的最小基因集,包括ADRAIA和SULF2,它们均通过FISH验证并被鉴定为共表达网络中的hub基因。 虽然使用顽固性癫痫患者的组织可能引入疾病或治疗相关的偏倚,但先前研究表明疾病史与基础树突或突触特性之间相关性极小。我们的样本表现出正常的层状组织和形态,尽管仍需要未来与健康对照进行比较。为减轻运输过程中的潜在缺氧,我们使用了低温(0°C)、氧合的蔗糖基溶液。虽然超过1.5小时的运输时间轻微增加了AHP幅度和AP上升支斜率,但其他电生理参数保持稳定(补充图4d)。我们的人体组织方法的稳健性也得到了先前工作的支持,该工作证明了树突电生理学未改变。 总之,我们的研究提供了人类SPNs的单细胞分辨率详细分析,揭示了其独特的形态、生理学和分子身份。我们提出,特征性的梭形形态可能反而反映了支持其独特放电活动和特化回路功能的趋同结构适应,可能出现在IT-和ET-谱系PCs中。重要的是,这种形态适应如何在人类皮层进化中出现,以及它们被调谐支持的具体功能是什么,仍然是悬而未决且引人入胜的问题,值得进一步研究。 方法(从略) 图表注释汇总
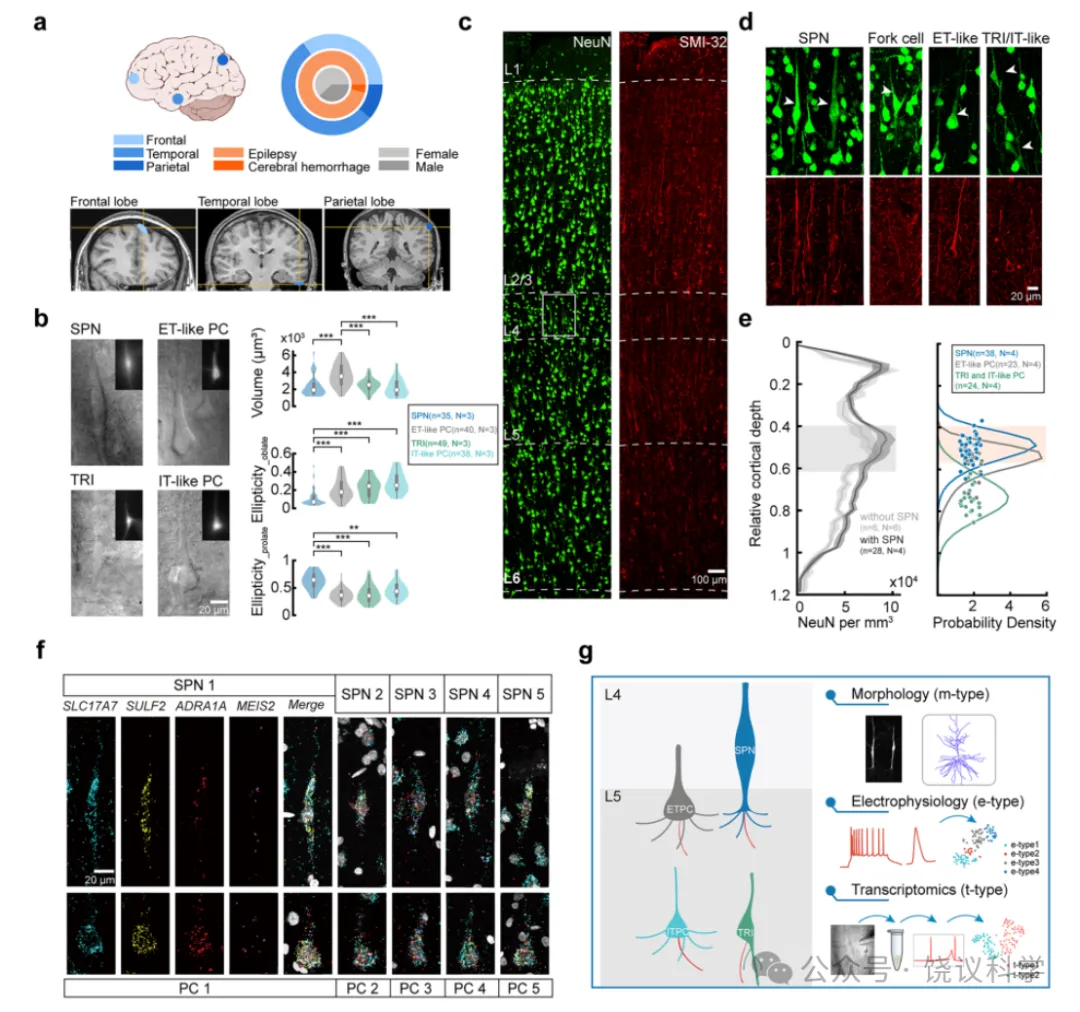
图1 | 人脑组织中SPNs、TRIs和PCs的识别。 a 上图:脑组织取样区域示意图(改编自SciDraw,https://doi.org/10.5281/zenodo.3925925, CC BY 4.0许可,https://creativecommons.org/licenses/by/4.0/;原始颜色已修改)。面板还显示了按皮层区域、疾病类型和性别分类的样本百分比。下图:显示切除部位的MRI图像。b 左图:脑切片中不同神经元类型的DIC图像,以及Alexa Fluor 488填充细胞体的荧光图像。右图:比较SPNs、ET-like PCs、TRIs和IT-like PCs的椭圆度和胞体体积的小提琴图(Kruskal-Wallis H检验)。c 代表性NeuN和SMI-32染色(n = 18, N = 4)。注意人颞叶皮层的层状结构(L1-6),以及L4中更高的细胞密度。d SPN(c中框出)、叉形细胞、ET-like PC、TRI及附近IT-like PC的SMI-32免疫染色。e 左图:NeuN阳性细胞密度作为相对于皮层厚度归一化的皮层深度的函数。阴影区域表示均值标准误(SEM)。右图:基于NeuN染色的不同类型神经元的层状分布(SPN、ET样PCs、TRI和IT样PCs)。阴影区域表示对应于L4层的区域。f:多重FISH图像,显示SPN和ET-PC标记基因 SULF2、ADRA1A 和 MEIS2 以及泛谷氨酸能神经元标记 SLC17A7 的表达(n = 5,N = 2)。细胞核用DAPI复染(白色)。g:实验范式示意图,突出显示靶向细胞类型和方法。p值来自双侧检验,并针对多重比较进行了校正。p < 0.05,p < 0.01,p < 0.001。每个小提琴图显示数据的核密度估计,白点表示中位数,粗线表示四分位距,细须线延伸至1.5倍四分位距内的最小值和最大值。样本量以n(细胞数)和N(患者数)表示。源数据以源数据文件形式提供
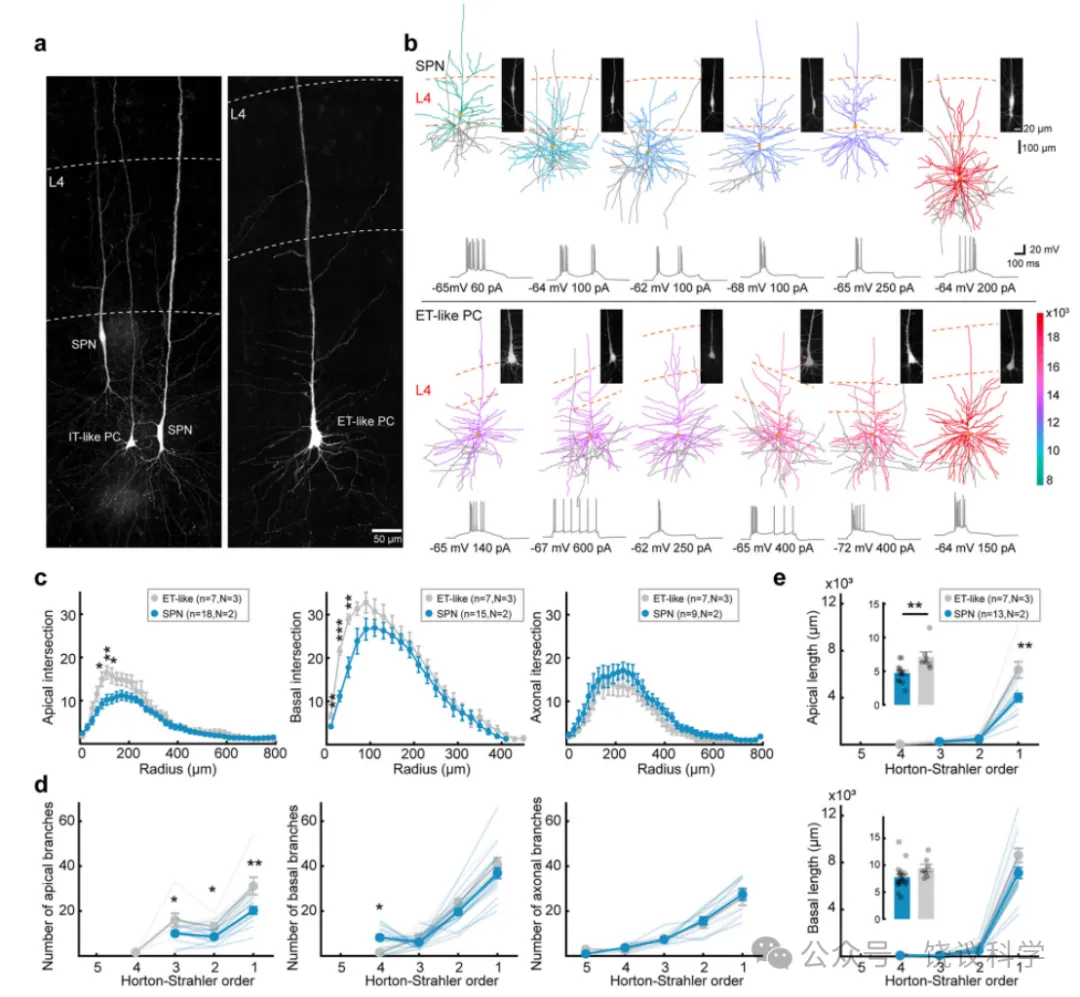
图2 | SPNs和ET-like PCs的形态特征。 a 代表性亲和素染色显示SPNs和PCs的形态(n = 26, N = 3)。注意左侧的两个SPNs和右侧图像的厚丛状ET-like PC。b(上图):SPN的树突(按总长度着色)和轴突(灰色)的重建图,以及基强度下500 ms电流阶跃诱发的锋电位反应。橙色圆圈表示胞体位置。L4层以虚线标出。每个细胞均标注了静息膜电位和基强度电流。插图显示对应胞体周围区域的图像。 (下图):重建的ET样PC及其电压反应。c:比较树突和轴突复杂性的组数据,包括Sholl交叉轮廓。d:总分支计数。e:分支级长度(插图中显示总长度)。采用双样本t检验或Wilcoxon秩和检验。数据以均值±标准误表示。p值来自双侧检验。p < 0.05,p < 0.01,p < 0.001。样本量以n(细胞数)和N(患者数)表示。源数据以源数据文件形式提供。
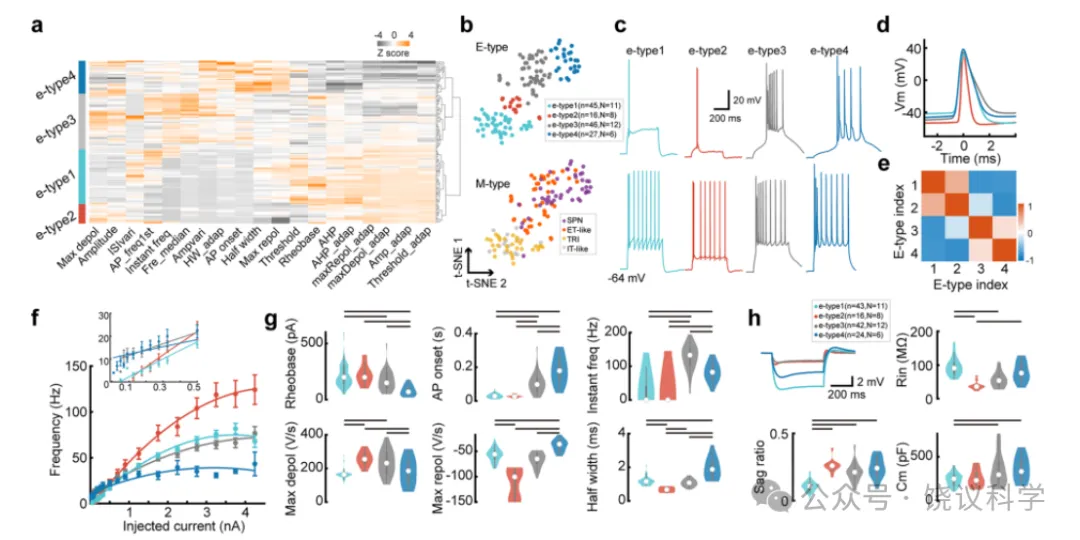
图3 | 包含SPN和PC的细胞群体中的电生理类型。 a:SPN、TRI和L5 PC的电生理特征热图。聚类分析得到四种电生理类型(e-type),即e-type1、e-type2,以及含有SPN的e-type3/e-type4。b(上图):对a中特征进行t-SNE投影,显示四种e-type的分离情况。(下图):每个记录细胞对应的形态学类型(m-type)。c:四种e-type在基强度(上图)或基强度以上500 pA(下图)的500 ms阶跃电流注射下的代表性电压反应。d:四种e-type的代表性动作电位波形和相图。注意e-type2的AP时程最短。e:热图显示基于电生理特征的不同e-type之间的Spearman相关系数。f:不同细胞类型的F-I曲线,显示阶跃电流诱发的AP频率。插图:对小电流注射的锋电位反应的放大视图。误差棒表示标准误SEM。g:基强度、基强度下AP起始潜伏期、基强度下最高瞬时AP频率,以及AP波形参数(最大去极化斜率、最大复极化斜率和半宽)的比较。注意f和g中数据的样本量与b中所述一致。h:对超极化阶跃电流的平均电压反应,以及输入电阻(Rin)、sag比值和膜电容(Cm)的比较。g和h采用Kruskal-Wallis H检验。p值来自双侧检验,并针对多重比较进行了校正。每个小提琴图显示数据的核密度估计,白点表示中位数,粗线表示四分位距,细须线延伸至1.5倍四分位距内的最小值和最大值,黑色横条表示p < 0.05。样本量以n(细胞数)和N(患者数)表示。源数据以源数据文件形式提供。
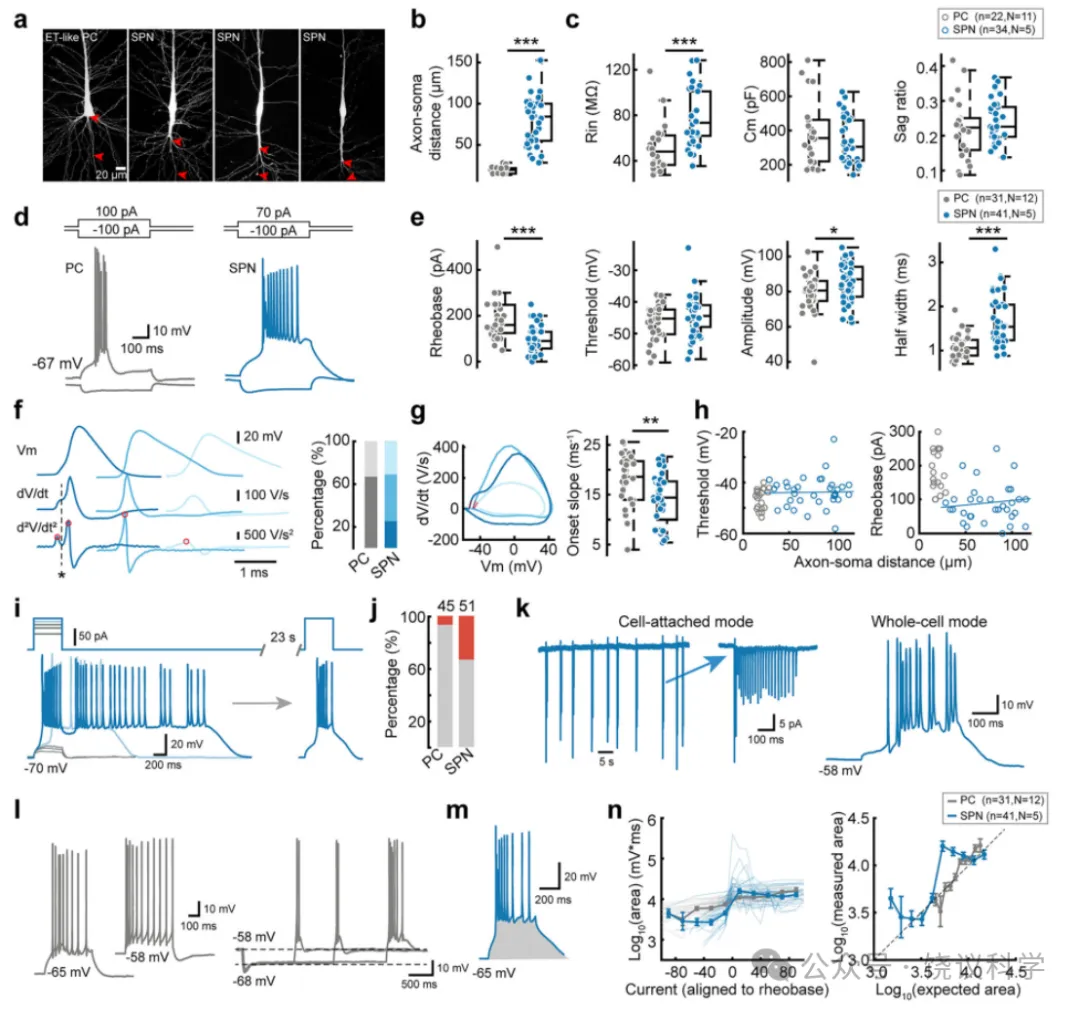
图4 | SPNs对弱输入表现出强烈的反应性和持久的持续性活动。 a 代表性亲和素染色的e-type3 PC和SPNs(n = 26, N = 3)。箭头指示轴突起始段。注意PC中轴突的胞体起源和SPNs中轴突的基树突起源。b e-type3/4 PCs(灰色)和SPNs(蓝色)轴突-胞体距离的比较(PC vs. SPN: p < 0.001)。c 被动膜特性的比较(Rin: p < 0.001; Cm: p = 0.55; Sag比率: p = 0.36)。d e-type3/4 PCs和SPNs在基强度电流和负电流阶跃下电压反应的代表性轨迹。e 比较基强度电流(p < 0.001)、阈电位(p = 0.28)、AP幅度(p = 0.019)和半宽(p < 0.001)的组数据。f 左图:SPNs中的AP波形及其对应的一阶和二阶导数。注意三种AP波形类型:深蓝色,上升支具有两个组分的AP;蓝色,上升支斜率正常但仅有一个上升支组分的AP;浅蓝色,上升支较慢的AP。星号指示AP上升支斜率的初始峰值(dV/dt)。右图:显示表现出三种不同AP波形的细胞百分比的柱状图。g 左图:f中所示AP的相图,红线指示起始斜率。右图:起始斜率的比较(p = 0.005)。h 基强度电流或电压阈值与轴突-胞体距离的关系图。蓝线是SPN数据的线性回归拟合。g和h中呈现的数据样本量与(e)和(c)中所述相同。i SPN示例轨迹显示持续性放电持续超过阶跃电流注入时间。注意在基强度(浅蓝色)或稍大电流阶跃(蓝色)下对电流注入的延长放电。同时注意在全细胞记录成功后23秒没有延长放电。j 具有(红色)和不具有(灰色)持续性活动的记录细胞百分比。提供了e-type3/4 PCs和SPNs的总数。k 细胞贴附式和全细胞记录显示SPN中自发产生的长时程AP簇状放电。l 左图:在-65或-58 mV下对电流注入的AP反应代表图。右图:超极化电流阶跃诱发的反弹AP簇状放电。注意簇状放电持续时间对阶跃电流持续时间的依赖性。m 测量对电流阶跃的亚阈值电压反应。灰色,计算曲线下面积(AUC)用于比较。n 左图:电压反应log(AUC)与相对于基强度的注入电流的关系。浅色,单个细胞;深色,平均数据。误差棒表示SEM。右图:比较两个细胞组中预期log(AUC)(源自线性模型)与测量log(AUC)的关系图。两组间比较采用双样本t检验或Wilcoxon秩和检验。(b, c, e, g)中p值源自双侧检验。*p < 0.05, **p < 0.01, ***p < 0.001。对于箱线图,箱体表示IQR,箱内线表示中位数,须线延伸至Q1和Q3的1.5倍IQR范围内的最小值和最大值。样本量以n(细胞数)和N(患者数)表示。源数据作为源数据文件提供。
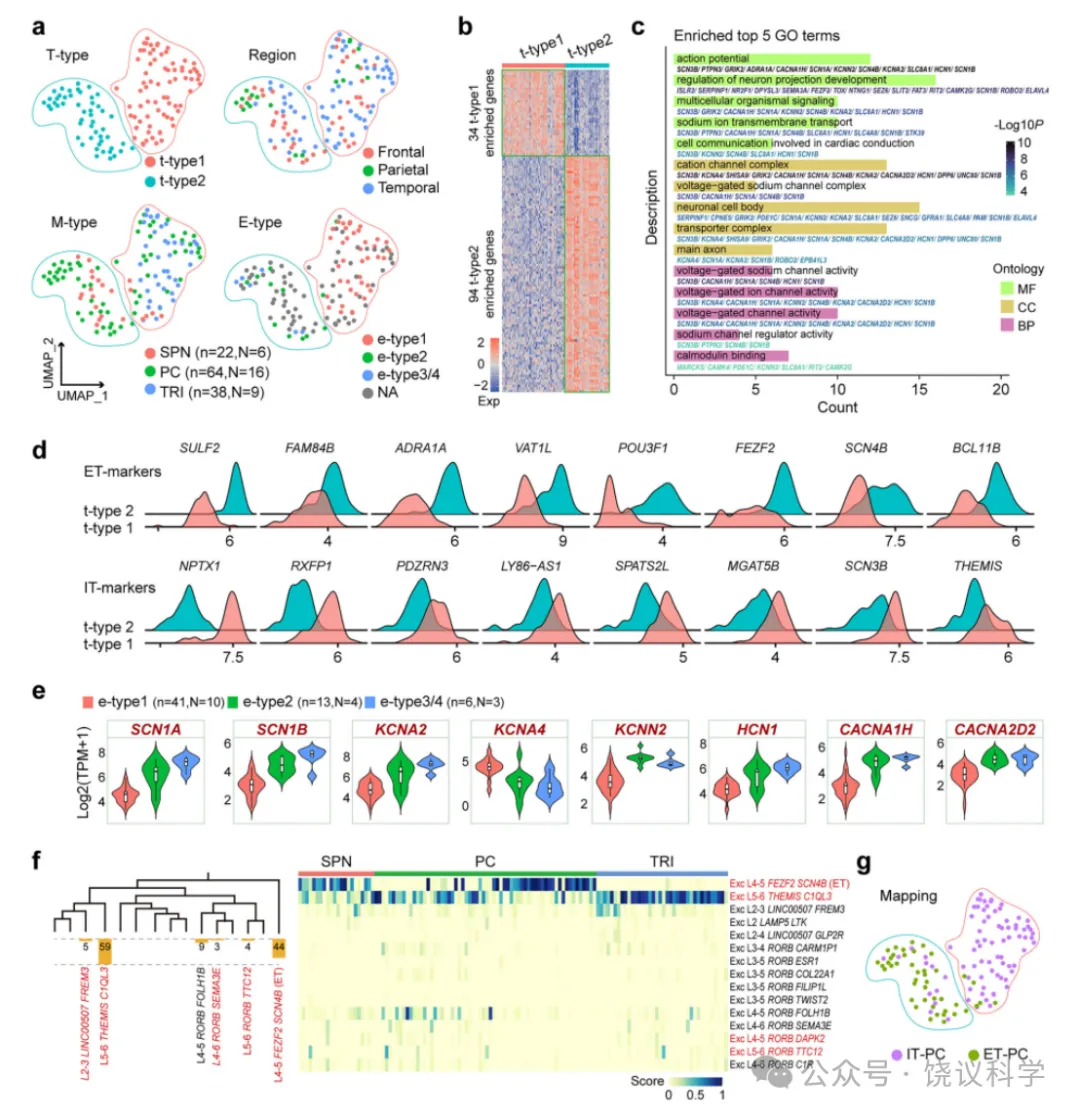
图5 | Patch-seq揭示SPNs的转录组IT/ET身份。 a 基于HVGs的124个高质量单细胞转录组的UMAP可视化,按转录组类型(t-type1, t-type2)、形态类型(m-type: SPN, PC, 和TRI)、电生理类型(e-type)和皮层区域着色。b 热图显示富集在t-type1和t-type2细胞中的DEGs表达。c t-type特异性基因的GO富集分析和MF(分子功能)、CC(细胞组分)和BP(生物过程)中前5个GO术语。统计显著性使用Benjamini-Hochberg FDR校正p值确定。d 山脊图显示两个t-type中已知IT和ET标记物的表达水平。e 小提琴图显示跨e-type差异表达的离子通道。f 左图:人MTG转录组分类学的树状图,条形图指示映射到每个簇的patch-seq样本数量。右图:热图显示每个patch-seq样本到参考分类学的映射评分.g UMAP图显示按映射结果着色的patch-seq样本聚类。每个小提琴显示数据的核密度估计,白点表示中位数,粗线表示四分位距,细须线延伸至1.5倍IQR范围内的最小值和最大值。样本量以n(细胞数)和N(患者数)表示。
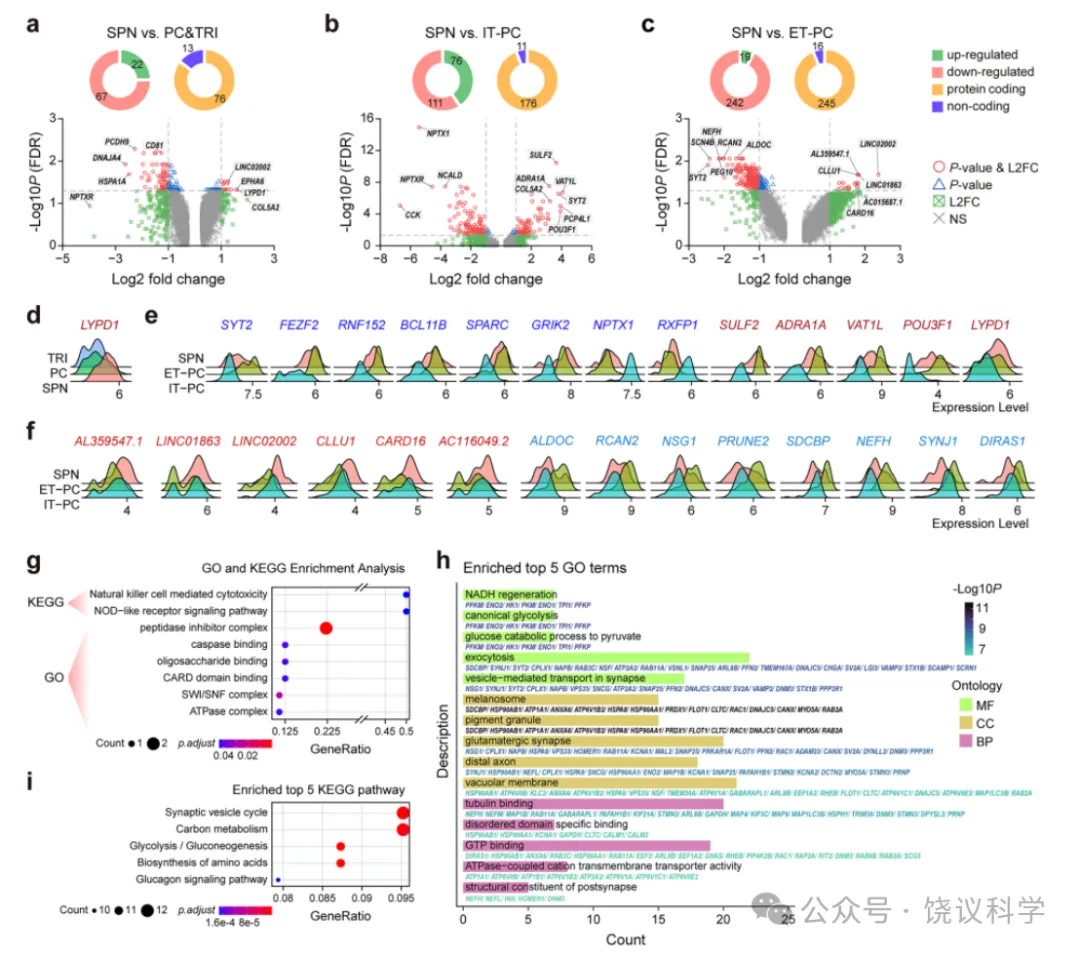
图6 | 转录组特征将SPNs与邻近PCs区分开来。 a 下图:SPNs与所有非SPNs(PCs和TRI神经元)之间DEGs的火山图。上图:显示上调和下调基因数量,或蛋白质编码和非编码RNA数量的饼图。b 与a类似,但为SPNs与IT-PCs之间的DEGs。c 与a类似,但为SPNs与ET-PCs之间的DEGs。d-f 跨细胞类型的差异表达谱。山脊图显示关键DEGs的归一化表达。d SPNs vs. 所有非SPNs的比较。e 与IT-PCs的比较,突出显示六个ET标记物、两个IT标记物(蓝色)和SPN标记物(红色)。f 与ET-PCs的比较,显示SPN群体中上调(红色)和下调(浅蓝色)的DEGs。g 使用SPN富集基因(vs. ET-PCs)的GO和KEGG富集分析。SPN下调基因(vs. ET-PCs)的GO和KEGG富集分析揭示前5个GO术语(h)和KEGG通路(i)。对于a-c和g-i,统计显著性使用Benjamini-Hochberg FDR校正p值确定。
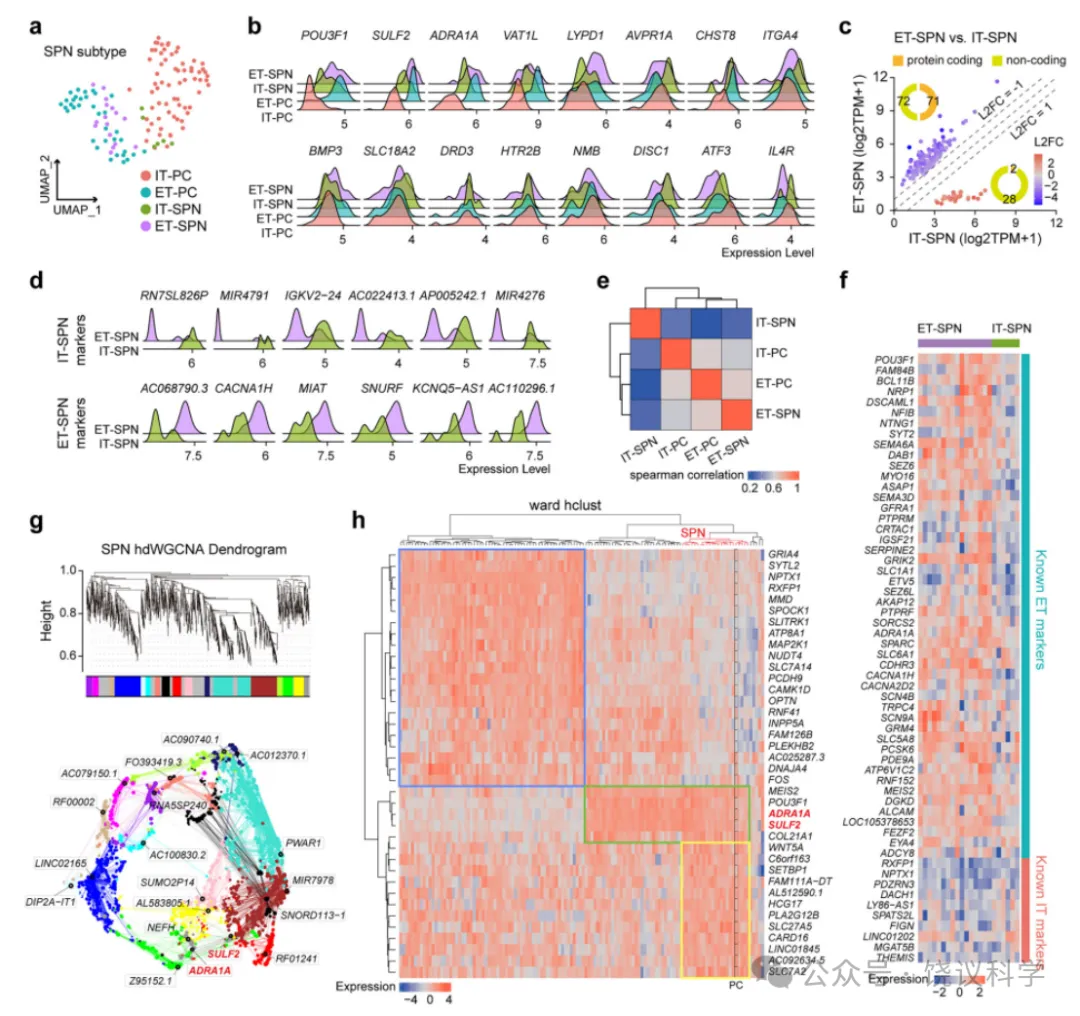
图7 | SPN异质性及其指纹基因。a:UMAP嵌入图揭示两种SPN亚型:IT-SPN和ET-SPN。 b:IT-SPN、ET-SPN、IT-PC和ET-PC中典型SPN标记物和PC亚型标记物的山脊图(ridge plots)。c:差异基因表达分析分别鉴定出IT-SPN和ET-SPN的30个和143个标记基因。插图:饼图显示蛋白编码基因与非编码RNA(ncRNA)的数量。d:代表性亚型标记基因的山脊图。e:基于高变基因(HVGs)的Spearman相关矩阵。f:先前鉴定的ET和IT标记基因的标化表达水平热图,分别突出显示IT-SPN和ET-SPN中的IT和ET特征(另见补充图9)。g(上图):hdWGCNA在patch-seq数据中识别出17个基因模块。(下图):显示17个基因模块核心基因(hub genes)的UMAP图。h:基于38个指纹基因的Ward层次聚类,将全部22个SPN(以及1个PC)与其他PC稳健地分离开来。